Proteínas “intrínsecamente desordenadas” y su rol en la biología moderna
Introducción
Durante décadas, la biología estructural asumió que una proteína necesitaba adoptar una conformación tridimensional estable para ejercer su función biológica. Esta noción empezó a cambiar con el descubrimiento de un gran conjunto de proteínas que carecen de una estructura fija bajo condiciones fisiológicas, denominadas proteínas intrínsecamente desordenadas (o IDPs, por sus siglas en inglés). Contrario a la visión tradicional de que la función proteica exige un plegamiento estable, hoy se reconoce que muchas proteínas sin estructura definida son funcionales y participan en procesos celulares esenciales[1][2]. Estas IDPs existen como conjuntos dinámicos de conformaciones que pueden cambiar según el entorno celular o la presencia de otras moléculas, desafiando el dogma estructura-función clásico de la biología molecular[1]. Sorprendentemente, pese a su falta de forma rígida, desempeñan papeles críticos en señalización celular, regulación génica, dinámica del citoplasma e incluso en la formación de condensados biomoleculares sin membrana[3].
Las IDPs han motivado una redefinición del vínculo entre secuencia, estructura y función proteica. En lugar de ver la ausencia de plegamiento estable como un defecto, ahora entendemos que es una característica funcional que confiere a estas proteínas propiedades únicas. Pueden interactuar de forma rápida y reversible con múltiples socios moleculares, actuar como nodos flexibles en redes de señalización y ensamblar compartimentos celulares líquidos mediante separación de fases. Este artículo analiza qué son las IDPs, por qué desafían el paradigma clásico de estructura-función y cómo están transformando nuestra comprensión de la biología celular moderna y de diversas enfermedades humanas.
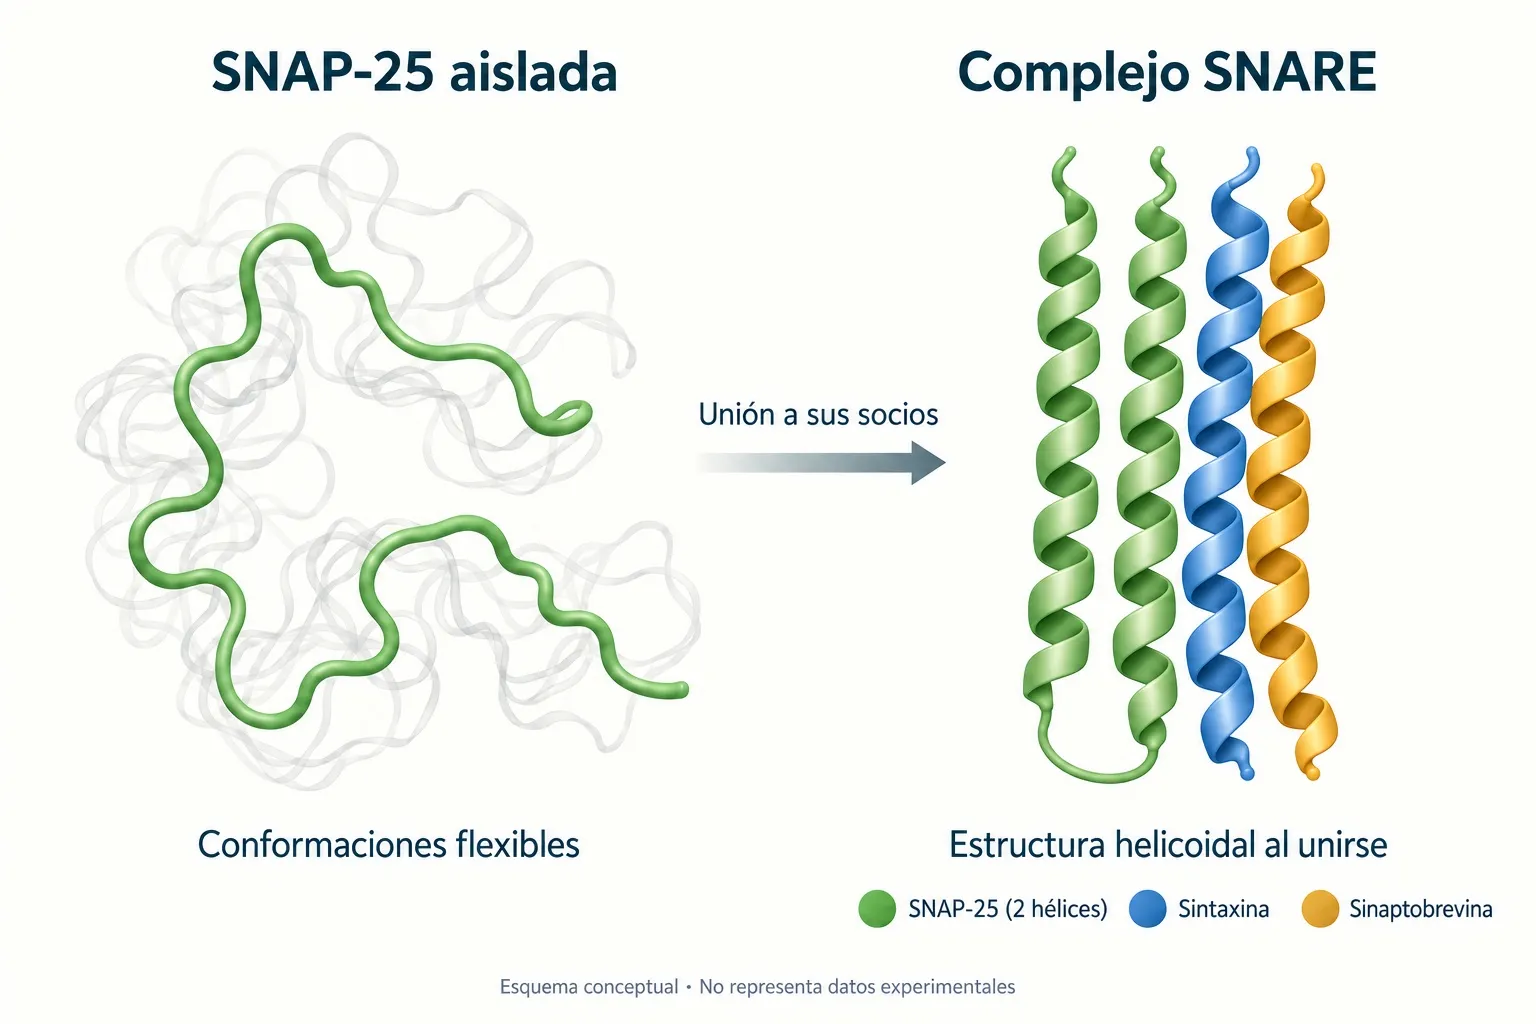
Esquema conceptual de SNAP-25 en estado aislado (izquierda) y formando parte del complejo SNARE (derecha). En estado aislado, la proteína SNAP-25 (verde, izquierda) adopta multitud de conformaciones flexibles indicadas por las líneas grises. Al unirse a sus socios (complejo SNARE, derecha), SNAP-25 adquiere una estructura helicoidal estable dentro del complejo multiproteico[4][5].
1. ¿Qué son las proteínas intrínsecamente desordenadas?
A diferencia de las proteínas clásicas con estructuras compactas y estables, las IDPs existen como conjuntos dinámicos de conformaciones flexibles en ausencia de sus ligandos o parejas de unión. Dicho de otro modo, una proteína intrínsecamente desordenada no adopta una estructura secundaria o terciaria única en solución, sino que explora un amplio rango de conformaciones de forma continua[6]. Esta falta de estructura fija no es un error de la naturaleza, sino una adaptación funcional: confiere a la proteína una versatilidad excepcional para responder a diferentes estímulos y unirse a múltiples objetivos moleculares. De hecho, muchas IDPs pueden plegarse parcialmente al interactuar con otras moléculas (fenómeno de plegamiento inducido por unión), o permanecer desordenadas como segmentos flexibles que conectan dominios estructurados[7]. Su descubrimiento obligó a replantear la visión clásica de que la secuencia determina un único plegamiento y éste la función, abriendo las puertas a una “biología estructural no convencional” enfocada en el estudio del desorden intrínseco en proteínas[1].
1.1 Definición y características principales
Una proteína intrínsecamente desordenada se define por la ausencia de una estructura tridimensional estable bajo condiciones fisiológicas normales[1]. En solución, estas proteínas carecen de hélices alfa o láminas beta persistentes, presentando en cambio una cadena polipeptídica altamente flexible que fluctúa entre multitud de conformaciones. Sus estructuras instantáneas pueden cambiar drásticamente con ligeras modificaciones del entorno celular (pH, fuerza iónica, modificación postraduccional, etc.), lo cual contrasta con la rigidez de las proteínas plegadas convencionalmente[8].
Varias propiedades distinguen a las IDPs. En términos de secuencia aminoacídica, suelen mostrar una composición atípica: tienen una alta proporción de residuos polares y cargados (como glutamato, lisina, arginina) y abundancia de prolina, pero pocos aminoácidos hidrofóbicos[9]. Esta composición sesgada impide la formación de un núcleo hidrofóbico estable, razón por la cual la cadena permanece desplegada o solo plegada de forma transitoria. Además, las IDPs exhiben a menudo regiones repetitivas o de baja complejidad (por ejemplo, secuencias enriquecidas en un solo aminoácido o motivos simples repetidos). Estas características les permiten comportarse de manera análoga a “polímeros biológicos” altamente dinámicos, recorriendo el espacio conformacional como lo haría una cadena aleatoria[6]. En presencia de distintas moléculas diana, una IDP puede moldear su conformación para encajar mediante interacciones débiles pero cooperativas, a veces adoptando estructuras más definidas al unirse (p. ej., formando hélices o láminas transitorias al contacto con su receptor).
Las IDPs se encuentran con frecuencia en proteínas involucradas en señalización celular, regulación de la expresión génica y respuesta a estrés celular, donde la flexibilidad estructural resulta esencial para su función. Por ejemplo, factores de transcripción, proteínas del citoesqueleto, chaperonas moleculares y componentes de condensados celulares suelen contener regiones intrínsecamente desordenadas. El reconocimiento de su abundancia ha llevado a la creación de bases de datos especializadas (como DisProt) que recopilan miles de proteínas desordenadas conocidas experimentalmente[10]. En conjunto, las IDPs constituyen un porcentaje significativo del proteoma, especialmente en organismos eucariotas complejos: se estima que aproximadamente 30–40% de los residuos proteicos en células eucariotas están en regiones desordenadas, frente a porcentajes mucho menores en bacterias o arqueas[11]. Esta tendencia se ilustra en la siguiente gráfica, destacando la prevalencia de segmentos largos desordenados en distintos dominios de la vida.
Porcentaje estimado de proteínas con segmentos intrínsecamente desordenados largos (>30 residuos) en diferentes dominios de la vida[11]. Las células eucariotas poseen una fracción sustancialmente mayor de proteínas con regiones desordenadas (hasta un tercio de sus proteomas) en comparación con bacterias y arqueas, reflejando la complejidad funcional añadida que aporta el desorden estructural.
En resumen, las características principales de las IDPs incluyen: ausencia de estructura secundaria/terciaria estable, alta flexibilidad conformacional, composición aminoacídica atípica y capacidad de respuesta contextodependiente. Su existencia amplía el paradigma estructura-función, demostrando que la funcionalidad proteica no siempre requiere un plegamiento fijo. Esta comprensión ha impulsado un cambio de perspectiva en biología estructural, abriendo un campo dedicado a explorar cómo el “desorden” en las proteínas puede ser igual de importante que el orden para la vida celular.
1.2 Diferencias con proteínas clásicamente estructuradas
Las proteínas globulares o fibrilares clásicas mantienen estructuras definidas gracias a interacciones intramoleculares estables (enlaces de hidrógeno, efectos hidrofóbicos, etc.) que estabilizan un estado nativo compacto. En contraste, las proteínas intrínsecamente desordenadas carecen de un núcleo hidrofóbico compacto, debido a su baja fracción de aminoácidos apolares[9]. Esto evita el colapso de la cadena en una conformación única. En lugar de ello, las IDPs permanecen extendidas o solo parcialmente plegadas, moviéndose continuamente entre múltiples conformaciones. Dicho comportamiento se asemeja al de una bobina estadística en términos de la física de polímeros, permitiendo que segmentos distantes de la cadena entren en contacto de forma transitoria y luego se separen sin barreras energéticas significativas[6].
Otra diferencia clave es que las IDPs pueden establecer interacciones multivalentes extensas con otras moléculas sin necesidad de ensamblar estructuras rígidas. Por ejemplo, al unirse a un blanco, una región desordenada puede plegarse sobre la marcha, abarcando una superficie de interacción mucho más grande de lo que sería posible con un dominio globular de tamaño equivalente[12]. Esto proporciona una especificidad y afinidad notables en la unión, que de otro modo requerirían una proteína mucho más grande si estuviera completamente plegada[12]. Paradójicamente, la falta de estructura predefinida permite a las IDPs lograr uniones altamente específicas pero reversibles: pueden acoplarse firmemente a un compañero (por ejemplo, mediante el plegamiento inducido que envuelve a la molécula diana), pero como la interacción se mantiene mediante múltiples contactos débiles en lugar de una única estructura rígida, la disociación puede ocurrir con relativa facilidad cuando cambian las condiciones.
Estas propiedades contrastan con la visión clásica de que “estructura es función”. En las proteínas ordenadas, el sitio activo o de unión está preformado y estable, otorgando especificidad pero a veces a costa de flexibilidad. En las IDPs, la estructura es maleable: se organiza sobre la marcha al interactuar. Consecuentemente, las IDPs pueden actuar como conectores modulares en la célula, uniéndose a distintos socios en diferentes momentos. Sus regiones desordenadas funcionan como “zonas de acoplamiento” intercambiables que, mediante modificaciones postraduccionales (fosforilación, acetilación, etc.), pueden cambiar de pareja de unión o modular su afinidad[13]. En suma, donde una proteína clásica aporta rigidez y persistencia, una IDP aporta plasticidad y dinamismo. Esta diferencia fundamental explica por qué tantas proteínas reguladoras en la célula contienen ambas clases de regiones: dominios plegados para funciones catalíticas o estructurales estables, y regiones desordenadas para regulación flexible y respuestas rápidas.
Por último, las IDPs evidencian que el plegamiento no es un requisito absoluto para la funcionalidad. Antes se creía que las secuencias sin estructura definida eran meros “enlaces” o regiones sin importancia. Ahora se sabe que esas regiones desordenadas pueden ser críticas para la función: por ejemplo, como interruptores conformacionales, como sensores del estado químico celular o como sitios de ensamblaje de complejos moleculares. La biología molecular ha pasado de una visión rígida a un modelo continuum de estructura proteica, donde el orden y el desorden son extremos de un espectro continuo que la evolución aprovecha para distintos propósitos[7].
2. Funciones biológicas de las IDPs
El rol de las proteínas intrínsecamente desordenadas resulta esencial en procesos celulares altamente dinámicos y complejos. Gracias a su flexibilidad, pueden actuar como nodos centrales en redes de señalización, sensores bioquímicos que detectan cambios en el entorno y componentes clave de la organización interna de la célula. A menudo funcionan como integradores de múltiples vías, uniendo diferentes moléculas en el lugar y momento adecuados. Sus interacciones suelen ser transitorias y regulables, lo que permite respuestas celulares rápidas y reversibles frente a estímulos externos. En general, las IDPs complementan las funciones de las proteínas estructuradas tradicionales, aportando versatilidad y rapidez allí donde se requiere plasticidad conformacional[14]. A continuación, exploramos algunas de sus funciones más destacadas.
2.1 Señalización celular y regulación génica
Muchas IDPs operan como verdaderos “hubs” moleculares en las redes de señalización celular, es decir, como centros de conexión que interactúan con múltiples proteínas distintas. Su naturaleza desordenada les permite conformar diferentes superficies de unión dependiendo del socio, modulando así diversas rutas de señalización. Por ejemplo, proteínas adaptadoras o scaffold en cascadas de señal frecuentemente contienen regiones intrínsecamente desordenadas que les permiten unir simultáneamente a varias enzimas, formando complejos multiproteicos transitorios. Gracias a interacciones débiles pero múltiples, estas IDPs logran una especificidad combinatoria: pueden enlazar distintas combinaciones de moléculas según qué modificaciones postraduccionales porten o qué señales hayan recibido[13]. Además, al carecer de estructura rígida, pueden unirse y separarse rápidamente, funcionando como interruptores on/off eficientes en la propagación de señales. Esta rapidez de ensamblaje y disociación sería difícil de alcanzar con dominios proteicos estrictamente plegados.
En el núcleo celular, numerosas proteínas regulatorias de la expresión génica contienen regiones desordenadas cruciales para su función. Un ejemplo claro son los factores de transcripción y coactivadores que activan genes: típicamente poseen dominios de unión al ADN estructurados, unidos a dominios de activación transcripcional intrínsecamente desordenados. Estas regiones desordenadas pueden interactuar con diversas subunidades del aparato transcripcional (como la ARN polimerasa II, mediadores, acetiltransferasas, etc.), facilitando la formación de complejos de iniciación de la transcripción. Su flexibilidad les permite “abrir” la cromatina y reclutar coactivadores mediante contactos simultáneos y cooperativos. Un caso paradigmático es el de los coactivadores BRD4 y MED1 en células madre embrionarias: ambos contienen largas regiones desordenadas que les permiten concentrar la maquinaria transcripcional en súper-potenciadores génicos. Estudios han demostrado que los IDRs de BRD4 y MED1 pueden formar condensados nucleares que compartimentalizan y potencian la activación de genes clave para la identidad celular[15][16]. En general, estos dominios de activación desordenados funcionan como “colas pegajosas” que se acoplan débilmente a múltiples componentes, logrando que factores necesarios para transcribir un gen se reúnan en el promotor adecuado en el momento preciso.
Este comportamiento molecular otorga a los procesos de señalización y regulación génica una eficiencia y rapidez notables. Las IDPs actuando como hubs pueden integrar varias vías al mismo tiempo, recibiendo y transmitiendo señales dependiendo de qué molécula se una en cada instante. Asimismo, al no estar constreñidas por una estructura fija, pueden ser rápidamente marcadas para degradación (por ejemplo, mediante ubiquitinación) cuando la señal debe apagarse[13], evitando así activaciones prolongadas indeseadas. Todo esto hace de las IDPs piezas centrales en el timing de respuestas celulares: permiten que la célula adapte velozmente su conducta ante cambios ambientales o señales de otras células, modulando la expresión de genes o la actividad de enzimas en cuestión de minutos. Sin la contribución de estas proteínas desordenadas, la señalización sería más rígida y lenta, lo que sería incompatible con la homeostasis de organismos complejos.
2.2 Formación de condensados biomoleculares
Una de las áreas más revolucionarias de la biología celular reciente es el reconocimiento de que las células albergan compartimentos sin membrana, conocidos como condensados biomoleculares u orgánulos membraneless, cuya formación depende en gran medida de proteínas intrínsecamente desordenadas. Ejemplos de estos condensados son el nucleolo, los cuerpos de Cajal, los cuerpos P (P-bodies) en el citoplasma, y los gránulos de estrés, entre otros. Todos ellos son estructuras celulares que no están delimitadas por una bicapa lipídica, sino que se forman por separación de fases líquido-líquido de macromoléculas: en esencia, ciertas proteínas y ácidos nucleicos se segregan del medio circundante para formar una fase densa (el condensado) coexistenado con una fase diluida[17]. Estos condensados se comportan como gotitas líquidas: pueden fusionarse, dividirse y exhibir dinámica interna de intercambio de moléculas.
Las IDPs juegan un papel fundamental en la formación de muchos condensados biomoleculares. Debido a su naturaleza flexible y a menudo a la presencia de dominios multivalentes (múltiples motivos de unión repetidos), las IDPs pueden establecer numerosas interacciones débiles concurrentes con otras proteínas o ARN. Cuando la concentración de tales moléculas multivalentes supera cierto umbral, estas interacciones débiles colectivamente impulsan una separación de fases, concentrando los componentes en una gota densa. En otras palabras, las IDPs aportan “pegajosidad” distribuida a lo largo de su secuencia, facilitando que las moléculas se agrupen sin necesidad de enlaces fuertes irreversibles[18]. Por ejemplo, proteínas nucleares como FUS, TDP-43 o hnRNPA1 (todas con regiones desordenadas ricas en motivos repetitivos) han demostrado formar gotitas líquido-densas in vitro e in vivo, conduciendo a estructuras análogas a gránulos de estrés o cuerpos nucleares. Los condensados resultantes actúan como compartimentos funcionales dentro de la célula: concentran determinadas enzimas y sustratos para facilitar reacciones (p. ej., síntesis ribosómica en el nucleolo, degradación de mRNA en P-bodies)[17], a la vez que segregan componentes que no deberían mezclarse con el resto del citoplasma.
Una característica importante es que las secuencias de IDPs que forman condensados suelen tener regiones de baja complejidad (por ejemplo, tramos con muchos residuos polares como glicina, glutamina, serina, o repeticiones de di/tripeptidos). Estas secuencias fomentan interacciones transitorias como enlaces de hidrógeno, interacciones π-π entre anillos aromáticos, puentes salinos débiles, etc., que colectivamente mantienen el condensado como un líquido cohesionado. Por ejemplo, en el caso mencionado de los coactivadores BRD4 y MED1 en súper-potenciadores génicos, sus regiones desordenadas permiten la formación de condensados nucleares en los que se concentra el aparato de transcripción, promoviendo una expresión génica robusta[15][19]. De forma similar, los gránulos de estrés citoplasmáticos se forman bajo condiciones de estrés gracias a proteínas desordenadas (como G3BP1) que, al ser fosforiladas o detectando señales de estrés, coalescen con ARN mensajeros no traducidos en gotitas que almacenan temporalmente los mRNAs.
Es importante destacar que, aunque inicialmente estas gotas tienen propiedades líquidas, su materialidad puede cambiar con el tiempo. En ocasiones, una condensación fisiológica sostenida puede llevar a transiciones hacia estados más gelificados o incluso sólidos (ver sección 3.1 sobre neurodegeneración). En condiciones normales, no obstante, muchos condensados permanecen fluidos y reversibles, disipándose cuando la señal o condición que los indujo desaparece. En conjunto, la capacidad de las IDPs para propiciar la formación de condensados biomoleculares ha revelado un principio organizativo fundamental de la célula: la compartimentalización sin membranas. Este principio explica cómo la célula logra ordenar sus reacciones bioquímicas en el espacio y el tiempo de manera eficiente, más allá de los orgánulos clásicos delimitados por membranas[17]. Las IDPs han emergido como protagonistas de esta “fase líquida” de la organización celular moderna.
2.3 Respuesta al estrés y homeostasis
Las proteínas intrínsecamente desordenadas también desempeñan papeles cruciales en la protección celular frente al estrés y en la mantención de la homeostasis proteica. Gracias a su flexibilidad conformacional, ciertas IDPs actúan como “amortiguadores” moleculares que previenen el daño irreversible de otras proteínas durante condiciones adversas. Un mecanismo común es la formación de ensamblajes reversibles: bajo estrés (por ejemplo, calor extremo, desecación, shock osmótico), algunas IDPs forman agregados o gránulos amorfos que secuestran temporalmente proteínas sensibles, protegiéndolas de la desnaturalización o la agregación descontrolada. Estos agregados son distintos de los agregados patológicos sólidos; más bien funcionan como matrices de protección que pueden disolverse cuando cesa el estrés, liberando nuevamente las proteínas funcionales. Se ha observado, por ejemplo, que ciertas plantas y organismos resistentes a la desecación producen IDPs (como proteínas LEA, Late Embryogenesis Abundant) que, al secarse el medio, se vuelven vítreas y preservan otras biomoléculas en un estado inerte, evitando su precipitación o inactivación[20]. Del mismo modo, en mamíferos, los gránulos de estrés formados durante situaciones adversas (ricas en IDPs) almacenan componentes de la traducción para impedir daños y reinstaurar la actividad normal una vez superado el episodio estresante.
Un ejemplo fascinante proviene de los tardígrados, micro-animales famosos por su resiliencia extrema. Estudios recientes mostraron que los tardígrados expresan proteínas intrínsecamente desordenadas únicas (denominadas TDPs) que, durante la deshidratación, se agrupan formando una matriz vítrea dentro de la célula[20]. Esta matriz, literalmente un vidrio biológico, inmoviliza otras moléculas cruciales e impide su agregación o degradación por el estrés. Al rehidratarse el organismo, la matriz se disuelve y las funciones biomoleculares se reanudan sin daño. Este mecanismo destaca cómo las propiedades materiales de las IDPs (pasar de líquido a sólido amorfo) pueden conferir tolerancia al estrés en ciertos organismos extremófilos[20].
En células humanas, aunque no forman vidrios, sí se reconoce que durante diversos tipos de estrés (térmico, oxidativo, etc.), muchas IDPs reorganizan la materia celular de forma adaptativa. Por ejemplo, proteínas desordenadas pueden formar ensamblajes nucleares o citoplasmáticos transitorios que concentran chaperonas y enzimas antioxidantes en sitios dañados, facilitando su acción. Asimismo, al actuar como sensores, algunas IDPs cambian de conformación en respuesta a cambios de pH o metabolitos, desencadenando cascadas de señal de estrés. Su facilidad para plegarse y desplegarse rápidamente es clave en estos procesos: les permite exponerse a modificaciones (como fosforilaciones en serie por quinasas de estrés) y posteriormente volver a su estado basal cuando las condiciones se normalizan. En conjunto, las IDPs aportan a la célula una herramienta para responder rápidamente a cambios ambientales drásticos, sacrificando temporalmente el orden estructural en pos de la supervivencia y restaurando la homeostasis una vez pasado el peligro.
Cabe destacar que esta versatilidad tiene límites: si el estrés es demasiado intenso o prolongado, incluso las IDPs pueden sobrepasar su capacidad protectora y acabar formando agregados irreversibles (como ocurre en enfermedades, sección 3). No obstante, en condiciones fisiológicas, la reorganización reversible mediada por IDPs es un componente esencial de la resiliencia celular. Permite a las células amortiguar fluctuaciones, proteger estructuras vitales y recuperarse tras perturbaciones sin daños permanentes. Es una estrategia que la evolución ha refinado especialmente en organismos y tejidos expuestos a variaciones extremas (semillas de plantas, embriones en diapausa, etc.), aunque sus principios generales aplican a casi todas las células vivas.
3. Implicaciones médicas y enfermedades relacionadas
El desorden intrínseco no siempre es beneficioso; en ciertas circunstancias, la misma flexibilidad que confiere funcionalidad puede conducir a patologías. Un exceso de regiones desordenadas, o fallos en los mecanismos que las regulan, puede resultar en interacciones inapropiadas o agregación proteica no controlada. De hecho, un gran número de proteínas asociadas a enfermedades humanas resultaron ser intrínsecamente desordenadas o contener dominios desordenados. Esta correlación es particularmente evidente en trastornos neurodegenerativos (como Alzheimer, Parkinson, ELA) y en diversos cánceres, donde proteínas clave con regiones desordenadas desempeñan roles centrales[14]. Comprender cómo el desorden contribuye a la patogénesis se ha vuelto un objetivo de primer orden en la biología médica moderna. A continuación, discutimos dos ámbitos en los que las IDPs han mostrado una relevancia destacada: las enfermedades neurodegenerativas y el cáncer.
3.1 Enfermedades neurodegenerativas
Varias proteínas intrínsecamente desordenadas están directamente involucradas en trastornos neurodegenerativos. Dos de los ejemplos más estudiados son α-sinucleína y tau, relacionadas respectivamente con la enfermedad de Parkinson y la enfermedad de Alzheimer (entre otras demencias). En condiciones normales, ambas proteínas están desordenadas en estado soluble: α-sinucleína es una proteína presináptica que carece de estructura fija en solución, y tau es una proteína axonal cuya función (estabilizar microtúbulos) no requiere un plegamiento rígido de toda su secuencia. Sin embargo, bajo ciertas condiciones patológicas, estas IDPs sufren cambios conformacionales y comienzan a agregarse formando estructuras fibrilares insolubles (amiloides) en las neuronas. Sus regiones flexibles, originalmente adaptables y dinámicas, pasan a ensamblarse en láminas β anómalas que se apilan unas con otras, generando agregados tóxicos. En la enfermedad de Parkinson, la α-sinucleína agrega formando los cuerpos de Lewy característicos, mientras que en Alzheimer la tau hiperfosforilada forma los ovillos neurofibrilares intracelulares.
La conexión entre desorden intrínseco y agregación patológica es un tema intenso de investigación. Se ha postulado que muchas de estas proteínas desordenadas asociadas a enfermedad pueden existir en equilibrio entre un estado líquido (soluble o incluso condensado reversible) y un estado sólido agregado. Por ejemplo, α-sinucleína puede formar condensados líquido-líquido transitorios en neuronas que quizá tengan funciones fisiológicas; no obstante, si la concentración aumenta o aparecen mutaciones, esos condensados pueden nuclear la formación de fibrillas rígidas. De modo similar, la proteína tau, normalmente desordenada cuando está unida de forma regulada a microtúbulos, bajo desequilibrios (p. ej. hiperfosforilación masiva en Alzheimer) se desprende y sus regiones desordenadas se autoensamblan en filamentos pareados helicoidales, perdiendo su funcionalidad[21]. En ambos casos, la transición de fase de un estado soluble/desordenado a uno insoluble/agrupado resulta catastrófica para la célula, ya que los agregados secuestran proteínas esenciales, alteran la homeostasis y desencadenan muerte neuronal.
Actualmente, la investigación busca entender qué factores impulsan estas transiciones patológicas. En muchos casos se han identificado mutaciones genéticas que elevan la propensión de la proteína a agregarse (por ejemplo, mutaciones familiares en α-sinucleína que aceleran su oligomerización). También se ha notado que cambios en el ambiente celular —como estrés oxidativo, perturbaciones en la concentración de iones/metales, fallos en sistemas de degradación proteica— pueden favorecer que una IDP antes manejable cruce el umbral hacia la agregación. Un marco teórico emergente propone que algunas enfermedades neurodegenerativas pueden considerarse “condensatopatías”: inicialmente, condensados líquidos funcionales de IDPs (como gránulos de estrés que incluyen TDP-43, FUS, etc.) se transforman progresivamente en estados gel o sólidos debido a daños acumulativos, perdiendo su reversibilidad. Identificar los desencadenantes de esa maduración aberrante es crucial. Por ejemplo, en la ELA se cree que microagregados de FUS (una proteína desordenada) en gránulos de estrés pueden “sembrar” la formación de agregados más grandes si no se resuelven a tiempo.
En resumen, las IDPs α-sinucleína, tau y otras muestran el filo doble del desorden: son funcionales y solubles normalmente, pero sus mismas propiedades les permiten agruparse en contextos equivocados, dando origen a patologías. Desentrañar cómo controlar o revertir estas transiciones es un desafío biomédico. Ya se están explorando terapias dirigidas a regiones desordenadas –por ejemplo, moléculas pequeñas o brisnas que estabilicen conformaciones benignas de α-sinucleína para impedir su nucleación amiloide. El avance en este campo podría inaugurar estrategias totalmente nuevas para combatir enfermedades neurodegenerativas, atacando no un sitio activo clásico (como enzimático) sino modulando la “energética conformacional” de proteínas desordenadas para evitar su autocolapso patológico.
3.2 Cáncer y señalización aberrante
El cáncer es otro ámbito donde las proteínas intrínsecamente desordenadas juegan papeles centrales. Muchas oncoproteínas y supresores tumorales contienen largas regiones desordenadas que resultan cruciales para regular la proliferación, muerte celular o reparación del ADN. En condiciones normales, esas regiones aportan las funciones reguladoras flexibles necesarias; pero mutaciones o desbalances en su control pueden llevar a una señalización aberrante que contribuya a la transformación maligna. Un estudio clásico mostró que las proteínas asociadas al cáncer y a la señalización celular tienden a estar enriquecidas en desorden intrínseco en comparación con proteínas promedio[22]. Ejemplos conocidos incluyen la proteína p53 (supresor tumoral maestro), cuyos extremos N-terminal y C-terminal son intrínsecamente desordenados y median interacciones con multitud de socios (reguladores de la transcripción, de la reparación de ADN, etc.); la oncoproteína c-Myc, un factor de transcripción cuyos dominios de transactivación son desordenados y le permiten reclutar diversos cofactores; o las quinasas de fusión de ciertos cánceres (producto de translocaciones cromosómicas) que adquieren regiones desordenadas nuevas tras la fusión, habilitándolas a interaccionar promiscuamente.
En oncogénesis, una región desordenada puede conferir a una proteína la capacidad de interactuar con numerosos efectores de señales de crecimiento. Si una mutación expande esa región o elimina frenos que limitaban sus interacciones, la proteína puede volverse hiperactiva. Por ejemplo, mutaciones que eliminan dominios reguladores estructurados pero dejan intactas regiones desordenadas de unión pueden resultar en una proteína constantemente “abierta” y activa, que engancha vías de señal todo el tiempo. Asimismo, mutaciones puntuales dentro de IDPs pueden crear nuevos motivos de interacción (por ejemplo, un nuevo sitio de fosforilación o un nuevo motivo de unión a SH3) que le permitan conectar con rutas inapropiadas, desencadenando cascadas de proliferación o supervivencia celular exageradas. En otros casos, la sobreexpresión misma de una IDP oncogénica lleva a que sature sus interactores y los secuestre del control normal. Esta “promiscuidad” en las interacciones, facilitada por el desorden, es un arma de doble filo: en la célula sana está finamente modulada, pero en la célula cancerosa suele estar fuera de control.
Debido a su importancia, las IDPs asociadas al cáncer están emergiendo como objetivos terapéuticos potenciales. Sin embargo, presentan un desafío: carecer de una estructura fija dificulta el desarrollo de fármacos tradicionales que encajen en un bolsillo definido. Aun así, se han concebido estrategias novedosas, como desarrollar moléculas que reconozcan la conformación cuando la IDP se une a su pareja (estabilizando interacciones aberrantes para marcarlas a degradación), o pequeñas moléculas que induzcan colapso de la IDP en un estado inactivo. Otra estrategia es apuntar a motivos lineales en las IDPs (pequeñas secuencias dentro de la región desordenada responsables de unirse a un receptor específico); bloquear esos motivos podría frenar interacciones críticas para la supervivencia tumoral. Aunque es difícil, el atractivo es grande: muchas oncoproteínas desordenadas eran consideradas “intangibles” por no ser farmacológicamente direccionables, pero avances recientes sugieren que con creatividad química pueden volverse blanco de fármacos[14]. Por ejemplo, se han identificado compuestos que se unen a regiones desordenadas del c-Myc impidiendo su asociación con MAX, apagando así la maquinaria proliferativa del gen myc.
En suma, el desorden intrínseco provee a las proteínas cancerosas de una plasticidad funcional para corromper los circuitos celulares; pero esa misma plasticidad podría explotarse terapéuticamente. A medida que entendemos mejor cómo las IDPs contribuyen a la señalización aberrante en cáncer –ya sea creando interfaces de unión ectópicas o evadiendo mecanismos de control–, estaremos en posición de diseñar intervenciones más precisas. El campo aún está en sus albores, pero la promesa de atacar el cáncer a través de sus proteínas desordenadas más escurridizas es una frontera emocionante en la investigación biomédica.
Conclusiones
Las proteínas intrínsecamente desordenadas han desafiado y ampliado la visión clásica de la biología estructural, demostrando que la falta de una forma definida no es incompatible con la funcionalidad biológica, sino que a menudo es la clave para funciones que requieren dinamismo. Lejos de ser rarezas, las IDPs resultan ser pilares esenciales de numerosos procesos celulares: permiten señalizaciones flexibles, actúan como arquitectos de compartimentos líquidos dentro de la célula, y salvaguardan la integridad molecular bajo estrés. Al mismo tiempo, su estudio ha esclarecido mecanismos patológicos en los que el desorden juega un papel protagónico, como en la formación de agregados neurotóxicos o en la plasticidad maligna de las células cancerosas.
En la biología moderna, integrar la “física del desorden” se ha vuelto imprescindible para una comprensión completa de la vida molecular. Esto implica no solo describir estructuras estáticas, sino caracterizar ensembles conformacionales y transiciones de fase en entornos biológicos. Herramientas computacionales y experimentales de vanguardia están surgiendo para tal fin. Por ejemplo, la predicción estructural mediante algoritmos como AlphaFold2 ahora incluye estimaciones de confianza que permiten identificar regiones posiblemente desordenadas; de hecho, se ha visto que AlphaFold2 puede reconocer con cierta precisión segmentos que permanecen desordenados hasta interactuar con un ligando, revelando así IDPs “condicionalmente estructurados” que antes pasaban desapercibidos[23][24]. Asimismo, bases de datos especializadas como DisProt y MobiDB recopilan información experimental sobre proteínas desordenadas y sus funciones[10], sirviendo de recurso para guiar nuevos estudios.
En perspectiva, el futuro de la investigación en proteínas intrínsecamente desordenadas es sumamente prometedor. Cada vez más, se reconoce que las reglas que rigen a estas proteínas –desde su evolución rápida hasta sus interacciones multivalentes– son distintas a las de las proteínas bien plegadas. Entender esas reglas nos permitirá abordar preguntas fundamentales (¿cómo emerge la función de la ausencia de estructura?, ¿cómo se regula el “caos” conformacional en la célula?) y también impulsar innovaciones aplicadas, desde fármacos dirigidos al desorden hasta materiales biomiméticos basados en proteínas desordenadas con propiedades emergentes. En definitiva, las IDPs están revolucionando nuestra comprensión de la célula y de la enfermedad, recordándonos que en el repertorio de la vida, la flexibilidad puede ser tan importante como la estabilidad. Integrar este concepto marcará en gran medida el rumbo de la biología molecular y estructural en las próximas décadas.
Referencias
- H. Jane Dyson & Peter E. Wright (2005). “Intrinsically unstructured proteins and their functions.” Nature Reviews Molecular Cell Biology 6(3):197–208. DOI: 10.1038/nrm1589 [25]
- Marco Necci et al. (2021). “Critical assessment of protein intrinsic disorder prediction.” Nature Methods 18:472–481. DOI: 10.1038/s41592-021-01117-3 [26][14]
- Mustafa Mir et al. (2018). “Dynamic multifactor hubs interact transiently with sites of active transcription in Drosophila embryos.” eLife 7:e40497. DOI: 10.7554/eLife.40497 [3][21]
- Salman F. Banani et al. (2017). “Biomolecular condensates: organizers of cellular biochemistry.” Nature Reviews Molecular Cell Biology 18(5):285–298. DOI: 10.1038/nrm.2017.7 [17][18]
- Benjamin R. Sabari et al. (2018). “Coactivator condensation at super-enhancers links phase separation and gene control.” Science 361(6400):eaar3958. DOI: 10.1126/science.aar3958 [15][27]
- Sreenivas Chavali et al. (2017). “Intrinsically disordered proteins adaptively reorganize cellular matter during stress.” Trends in Biochemical Sciences 42(6):410–412. DOI: 10.1016/j.tibs.2017.04.007 [20]
- Anna M. Melo et al. (2016). “A functional role for intrinsic disorder in the tau–tubulin complex.” Proceedings of the National Academy of Sciences (PNAS) 113(50):14336–14341. DOI: 10.1073/pnas.1612136113 [28]
- Lukasz M. Iakoucheva et al. (2002). “Intrinsic disorder in cell-signaling and cancer-associated proteins.” Journal of Molecular Biology 323(3):573–584. DOI: 10.1016/S0022-2836(02)00969-5 [22]
- Alexander K. Dunker et al. (2001). “Intrinsically disordered protein.” Journal of Molecular Graphics and Modelling 19(1):26–59. DOI: 10.1016/S1093-3263(00)00138-8 [29]
- T. Reid Alderson et al. (2023). “Systematic identification of conditionally folded intrinsically disordered regions by AlphaFold2.” PNAS 120(44):e2304302120. DOI: 10.1073/pnas.2304302120 [30][31]
- DisProt Database (v2023) – Database of Protein Intrinsic Disorder. Disponible en: https://disprot.org [10]
- The AlphaFold Protein Structure Database (2022) – AlphaFold-predicted structures and disorder annotations. Disponible en: https://alphafold.ebi.ac.uk [32]
(Las referencias 11 y 12 corresponden a recursos y bases de datos mencionados en el texto. Se incluyen para complementar las citas de artículos primarios.)
[1] [7] [9] [12] [13] [29] Intrinsically unstructured proteins and their functions | Nature Reviews Molecular Cell Biology
[2] [8] [10] [14] [22] [26] [28] Critical assessment of protein intrinsic disorder prediction | Nature Methods
[3] [11] [21] [25] Intrinsically disordered proteins - Wikipedia
https://en.wikipedia.org/wiki/Intrinsically_disordered_proteins
[4] [5] [6] Single Molecule FRET: A Powerful Tool to Study Intrinsically Disordered Proteins
https://www.mdpi.com/2218-273X/8/4/140
[15] [16] [19] [27] Coactivator condensation at super-enhancers links phase separation and gene control - PubMed
https://pubmed.ncbi.nlm.nih.gov/29930091/
[17] [18] Biomolecular condensates: organizers of cellular biochemistry | Nature Reviews Molecular Cell Biology
[20] Intrinsically Disordered Proteins Adaptively Reorganize Cellular Matter During Stress - PubMed
https://pubmed.ncbi.nlm.nih.gov/28487210/
[23] [24] [30] [31] [32] Systematic identification of conditionally folded intrinsically disordered regions by AlphaFold2 - PubMed