El papel de los virus “gigantes” en los cambios de los ecosistemas
Introducción
Durante décadas, los virus se describieron en ecología como entidades relativamente “simples”, cuya importancia principal radicaba en infectar células y multiplicarse. Esa narrativa empezó a cambiar con fuerza cuando se consolidó el hallazgo de los llamados virus gigantes (también conocidos, en sentido amplio, como parte del conjunto de virus ADN grandes nucleocitoplasmáticos), debido a que varios de ellos presentan tamaños comparables a microbios celulares pequeños y genomas de complejidad inusual para la virología clásica. [1]
Hoy, la evidencia acumulada indica que estos virus están ampliamente distribuidos en ambientes acuáticos y también pueden aparecer en contextos terrestres y criogénicos, incluyendo depósitos antiguos como el permafrost. Su relevancia ecosistémica se explica porque infectan principalmente eucariotas microbianos (protistas y algas), que son nodos tróficos centrales: modifican la mortalidad y la sucesión de comunidades, reconfiguran el reciclaje de nutrientes y alteran el destino del carbono en la red microbiana y en flujos hacia profundidad. [2]
En paralelo, el estudio genómico y metagenómico de estos virus ha mostrado que pueden portar genes que no encajan en la idea “minimalista” del virus: desde módulos de reparación de ADN y componentes de traducción hasta genes metabólicos auxiliares (AMGs) capaces de reprogramar temporalmente el metabolismo del hospedero para favorecer la replicación viral. Esta capacidad conecta directamente a los virus gigantes con cambios funcionales medibles en el ecosistema, más allá del simple “control poblacional” por lisis. [3]
¿Qué son los virus gigantes?
La expresión “virus gigantes” no designa una sola especie, sino un conjunto de linajes de virus ADN de gran tamaño que comparten, en términos generales, viriones y genomas extraordinariamente grandes para el estándar viral. En la práctica, la literatura los asocia con el grupo NCLDV (hoy incluido en marcos taxonómicos que agrupan a estos virus ADN grandes), caracterizados por infectar eucariotas y por contar con repertorios genéticos extensos que a menudo incluyen genes raros o inesperados en virus. [4]
Descubrimiento y primeras especies identificadas
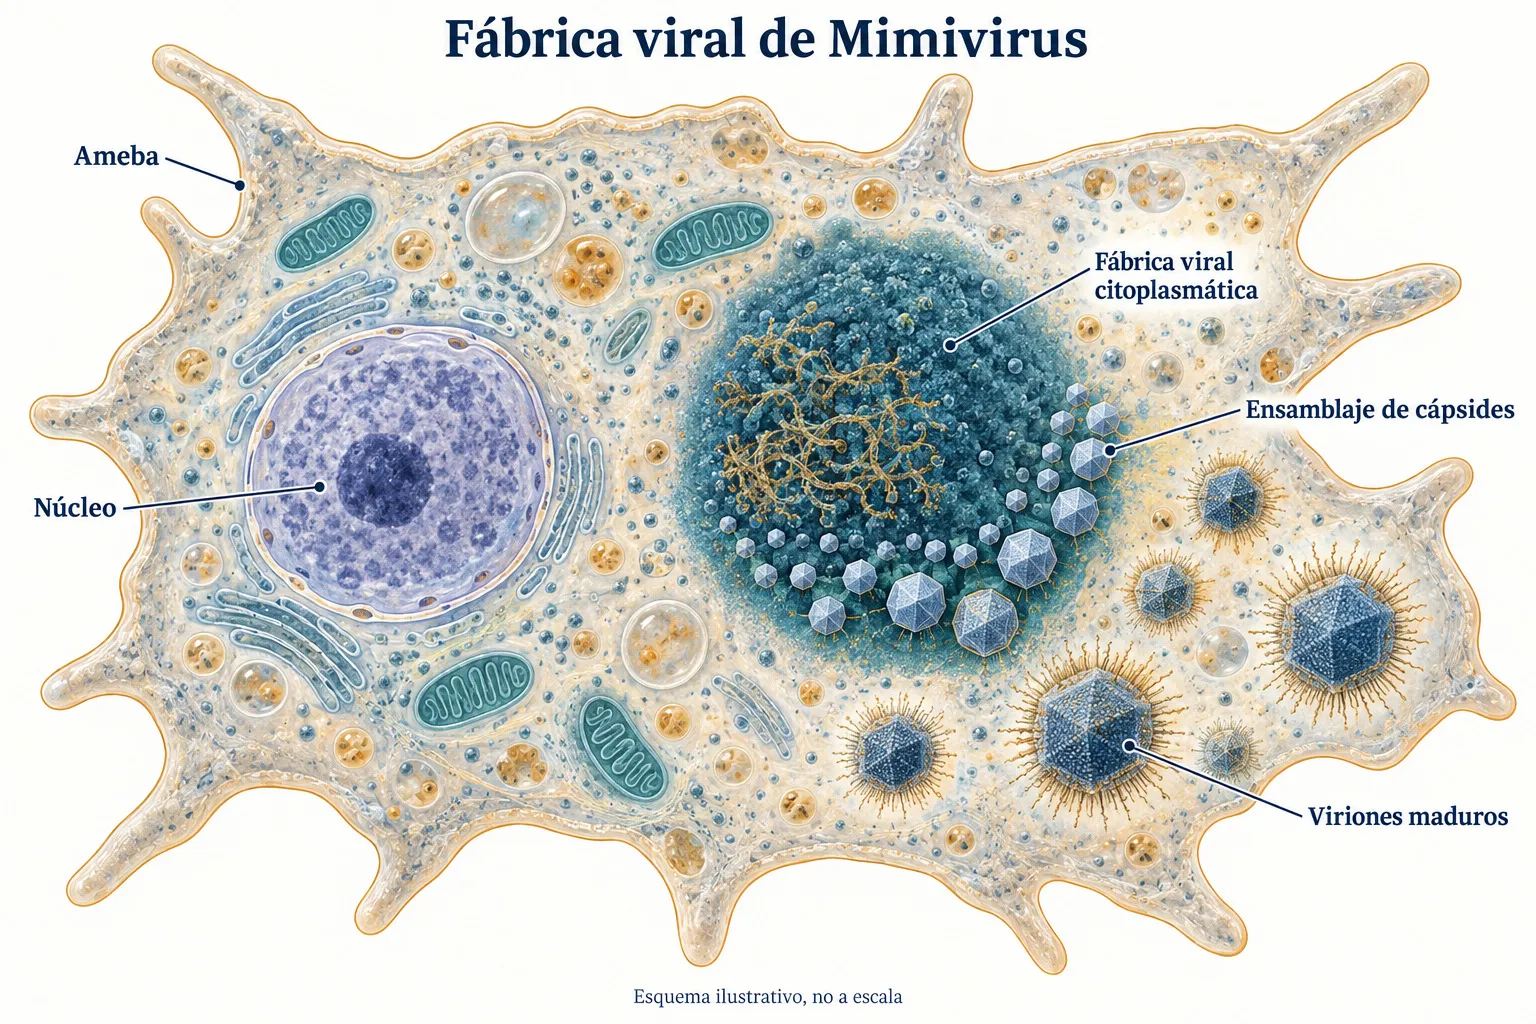
El caso emblemático es Mimivirus: fue aislado originalmente durante la investigación de un brote de neumonía asociado a una torre de enfriamiento en Bradford[5] (muestra de 1992), pero se identificó como virus años después y se reportó formalmente como “un virus gigante en amebas” en 2003. La confusión inicial con una bacteria se entiende porque su tamaño lo hace visible a microscopía óptica y comparable, en escala, a bacterias pequeñas. [6]
A partir de ese punto, se describieron nuevos linajes que expandieron el rango de tamaños y complejidad: Pandoravirus (con genomas reportados del orden de ~1.9–2.5 Mb) y virus recuperados de permafrost antiguo como Pithovirus sibericum (partícula ~1.5 µm y genoma ~600 kb) y Mollivirus sibericum (genoma ~651 kb). En conjunto, estos hallazgos obligaron a replantear, en biología evolutiva y ecología microbiana, dónde termina el “mundo viral” y dónde comienzan rasgos típicos de sistemas celulares. [7]
Características estructurales y genómicas
En estructura, muchos virus gigantes presentan cápsides o envolturas complejas, a veces con fibras superficiales, vértices especializados y “fábricas virales” intracelulares (sitios de ensamblaje) que organizan la replicación y empaquetamiento. En términos cuantitativos, hay casos donde la partícula completa (incluyendo fibrilas) alcanza escalas cercanas a ~700–750 nm, y otros con morfologías tipo “ánfora” ovoides cercanas al micrómetro. [8]
Genómicamente, su rasgo distintivo es el tamaño (centenas de kb a varios Mb) y el contenido funcional: algunos genomas codifican factores de traducción o tRNAs, enzimas de reparación de ADN, fotoliasas, componentes de ubiquitinación y regiones que sugieren adquisición de genes por transferencia horizontal, incluso con segmentos de probable origen bacteriano. El virus CroV, por ejemplo, se describió con un genoma ~730 kb y con repertorios de genes “inusuales” para virus, incluyendo elementos asociados con traducción y reparación, además de una región grande (decenas de kb) atribuible a origen bacteriano. [9]
Estas señales apoyan una historia evolutiva “mosaico”: los virus gigantes parecen haber acumulado genes de múltiples fuentes (hospederos eucariotas, bacterias y otros elementos móviles), manteniendo al mismo tiempo un núcleo conservado de genes de cápside/replicación. La consecuencia ecológica es directa: si el virus porta genes que alteran transporte de nutrientes, rutas metabólicas o regulación celular, entonces la infección puede producir cambios funcionales (no solo demográficos) en poblaciones clave del ecosistema. [10]
Virus gigantes y regulación de poblaciones microbianas
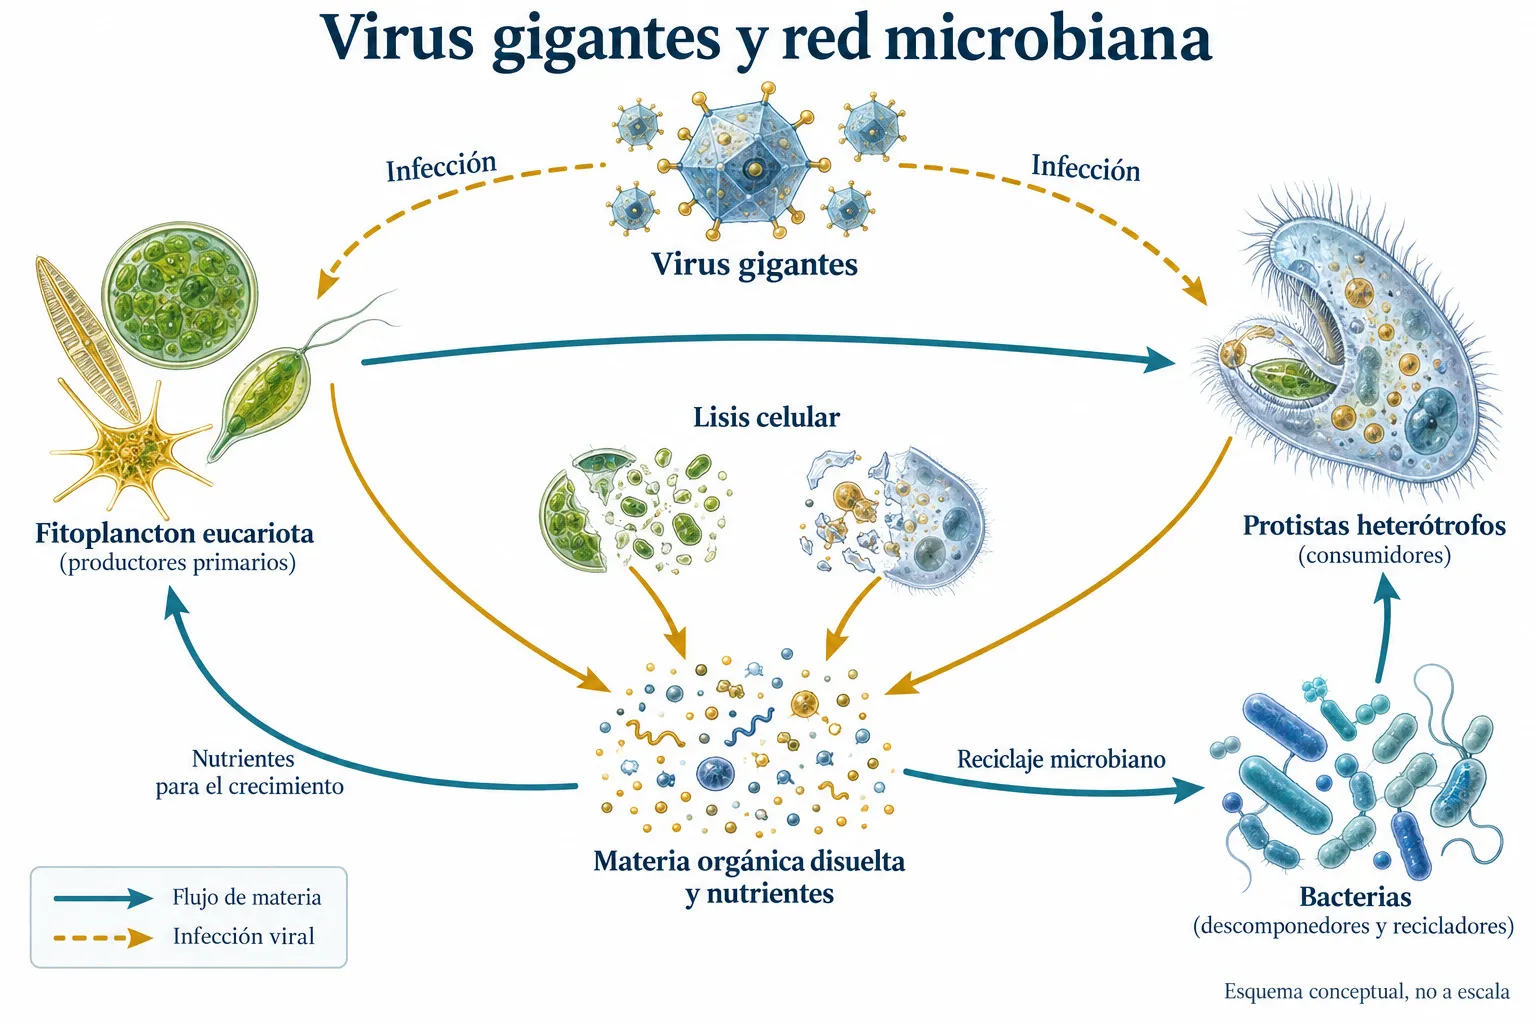
En ecología microbiana, los virus se entienden como agentes de “control top-down”: regulan abundancias de microorganismos al causar infección y lisis, y con ello influyen en la estructura de la comunidad y en el reciclaje de materia orgánica y nutrientes. En el océano, esa influencia es particularmente visible por la enorme abundancia de virus y por el rol central de bacterias, protistas y fitoplancton en el flujo de energía. [12]
Los virus gigantes amplían esta lógica porque apuntan, sobre todo, a eucariotas microbianos que son “ingenieros” del ecosistema: productores primarios (algas) y consumidores microzooplanctónicos (protistas grazers). Al modular la mortalidad de estos grupos, pueden gatillar cambios de estado (por ejemplo, colapso de floraciones), alterar redes tróficas y redirigir carbono hacia rutas de reciclaje o exportación. [13]
Infección de protistas y algas
Una parte crítica del impacto ecosistémico ocurre porque estos virus infectan organismos que conectan múltiples niveles tróficos. En ecosistemas marinos[14], por ejemplo, se mostró que un microflagelado depredador (“grazer”) relevante para el consumo de bacterias y fitoplancton puede ser infectado por un virus gigante (CroV), lo que implica que los virus no solo afectan a productores, sino también a consumidores clave de la red microbiana. [15]
En algas, las infecciones por virus ADN grandes como coccolithoviruses (EhV) o virus gigantes como AaV (asociado a “brown tides”) pueden terminar en lisis y liberación masiva de biomasa y metabolitos al ambiente. Esa liberación alimenta bacterias heterótrofas, cambia la disponibilidad de nutrientes y puede desplazar la comunidad hacia ensamblajes con mayor reciclaje microbiano, lo que se traduce en cambios medibles de composición y función del ecosistema. [16]
Influencia en el ciclo del carbono
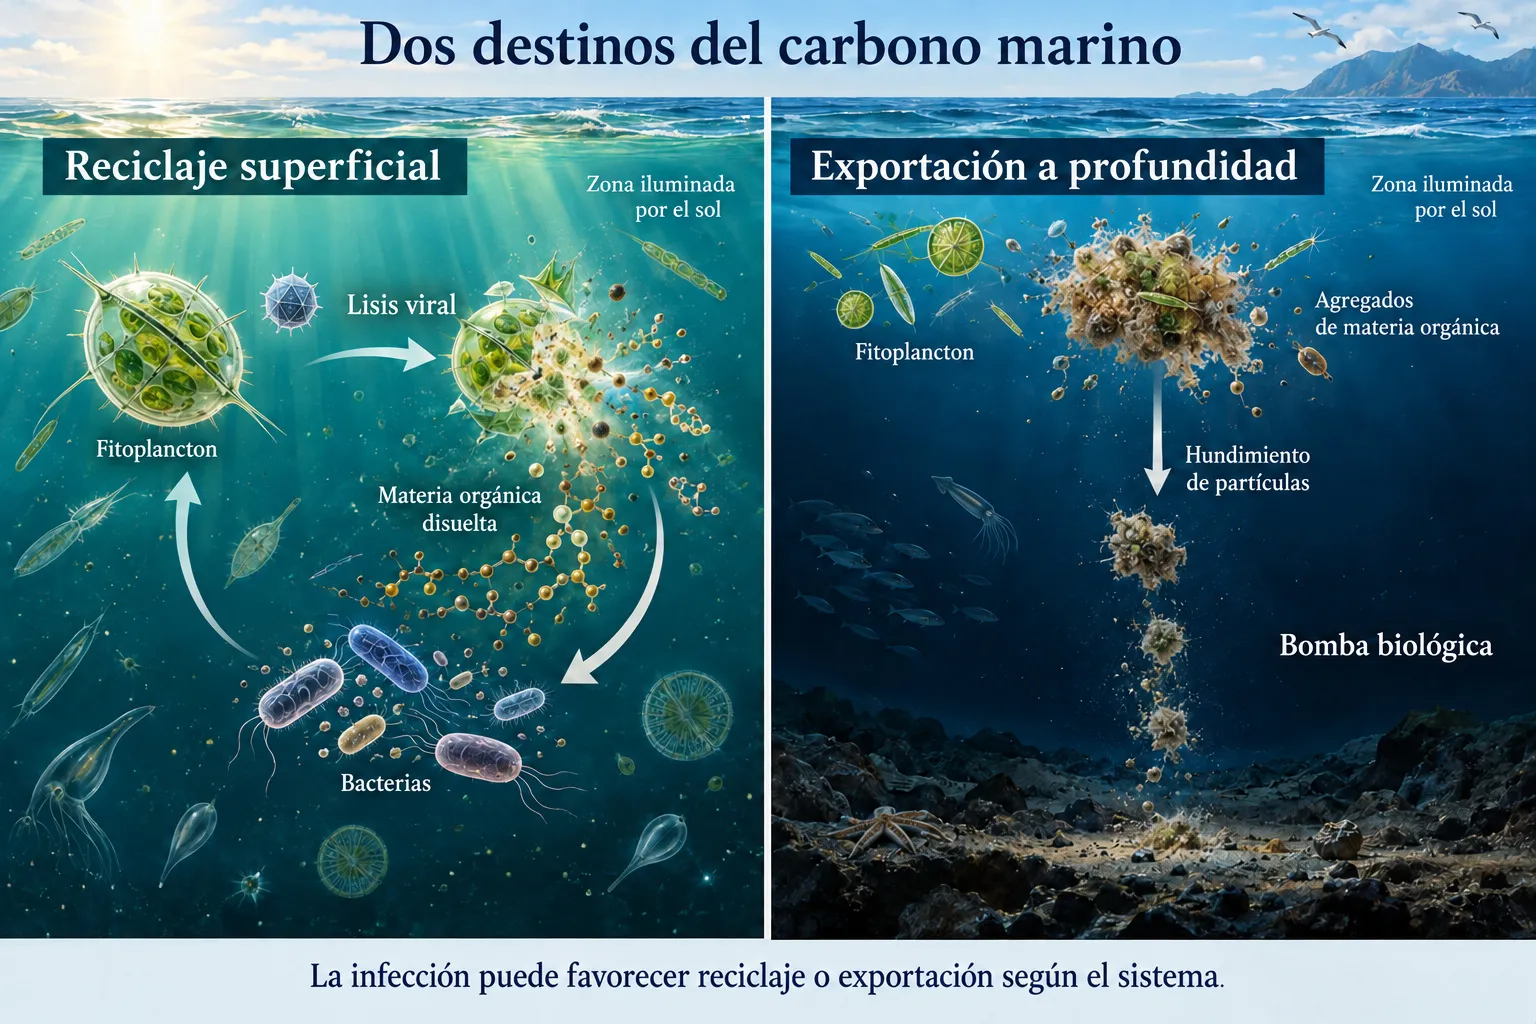
La relación entre infección viral y carbono se suele explicar con el concepto de “viral shunt”: al lisar células, los virus convierten biomasa particulada en materia orgánica disuelta y detritos que son rápidamente reutilizados por microorganismos, desviando carbono de la transferencia a niveles tróficos superiores. Este marco se originó en trabajos fundacionales sobre virus y ciclos de nutrientes en el mar y se consolidó como eje interpretativo de la virología marina moderna. [17]
Para virus gigantes en particular, hay datos cuantitativos que apoyan su relevancia en la “zona precisa” donde ocurre gran parte de la producción primaria. En el análisis metagenómico de Tara Oceans Expedition[18], se estimó que la abundancia de genomas NCLDV en muestras de la zona fótica estuvo en el orden de 10^4–10^5 genomas por mL, y fue menor en zonas de mínimo oxígeno (10^2–10^3 por mL). Estas magnitudes sugieren que, aun sin contar partículas virales totales, los virus ADN grandes pueden ser componentes abundantes del viroma eucariota en regiones productivas. [19]
Un resultado clave que conecta virus (incluyendo virus ADN grandes que infectan algas) con “cambio ecosistémico” es que la infección puede modificar si el carbono se recicla superficialmente o se exporta a profundidad. En el Atlántico Norte[21], se reportó que infecciones por coccolithovirus en floraciones de Emiliania huxleyi se asociaron con agregación de partículas, cambios en el pastoreo zooplanctónico y mayores flujos verticales de carbono particulado (orgánico e inorgánico), con un máximo de exportación en estados tempranos de infección. Este tipo de acoplamiento infección–agregación–exportación reconfigura el funcionamiento del bombeo biológico. [22]
Impacto en floraciones algales
Las floraciones (incluyendo eventos nocivos) son ejemplos clásicos de cambios rápidos de estado en ecosistemas acuáticos. En sistemas modelo de coccolitóforos, se demostró que la infección viral puede interactuar con programas de muerte celular del hospedero (por ejemplo, activación y reclutamiento de metacaspasas durante infección lítica), y también puede amplificarse por mecanismos de comunicación y señalización, como la producción de vesículas extracelulares durante interacciones alga–virus que favorecen la infectividad a escala de floración. [23]
En otros sistemas, virus gigantes se asocian con el colapso o regulación de floraciones dañinas. El virus AaV, por ejemplo, se describe como un virus (dentro del universo NCLDV) capaz de infectar y lisar a Aureococcus anophagefferens, organismo responsable de “brown tides” con impactos ecológicos y económicos; además, hay evidencia de que este tipo de interacción regula el destino de la floración. Complementariamente, registros sedimentarios han sugerido persistencia a largo plazo de poblaciones de hospedero y virus tipo coccolithovirus por siglos, lo cual implica que estas interacciones pueden dejar huellas de largo plazo en la dinámica del sistema. [24]
Virus gigantes y evolución genética
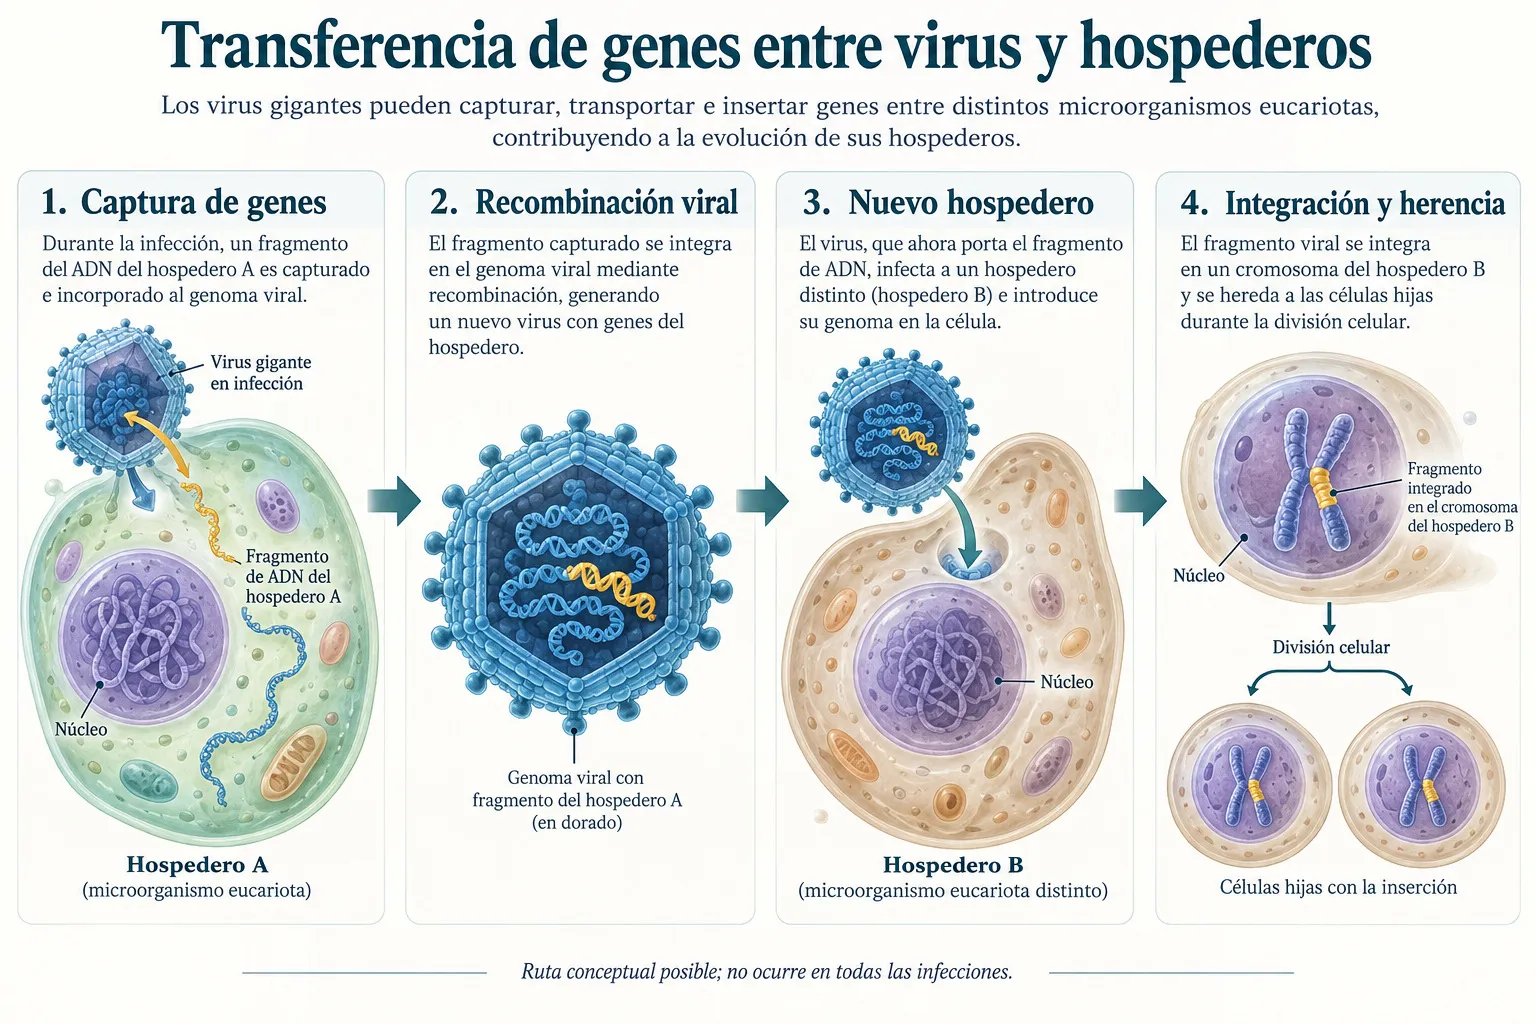
Además de sus efectos demográficos y biogeoquímicos, los virus gigantes destacan porque conectan linajes evolutivos a través del intercambio de genes. Su gran tamaño genómico y su ciclo en eucariotas microbianos (muchos de los cuales fagocitan partículas y conviven con bacterias endosimbiontes) generan oportunidades para recombinación, captura génica y transferencia horizontal de genes (HGT), con consecuencias potenciales para la adaptación de comunidades completas. [25]
Transferencia horizontal de genes
En ambientes naturales, la HGT asociada a virus grandes no es una hipótesis abstracta: en el análisis metagenómico marino de NCLDV se identificaron casos de transferencia lateral de genes vinculando linajes virales (por ejemplo, Megaviridae) con eucariotas tipo oomycetes, apoyando la idea de un intercambio bidireccional entre virus y hospederos. Este resultado es importante para ecosistemas porque los genes transferidos pueden modificar rasgos ecológicos (metabolismo, defensa, interacción trófica) y, por tanto, influir en la sucesión comunitaria. [26]
A escala de genoma, hay señales claras de orígenes mixtos. En CroV se reportó una región genómica grande atribuible a origen bacteriano, junto con genes que suelen considerarse “celulares” (p. ej., componentes de traducción y rutas metabólicas), lo cual sugiere que los virus gigantes pueden actuar como “vehículos” de mosaicos genéticos y como puntos de convergencia evolutiva entre dominios de la vida. En permafrost, Mollivirus mostró también proporciones notables de genes con homologías cercanas a otros virus gigantes y al hospedero (amebas), consistentes con intercambio génico histórico. [27]
Finalmente, la integración estable de fragmentos o genomas virales en hospederos (“endogenización”) amplía el impacto desde lo ecológico a lo macroevolutivo. Un análisis comparativo reportó endogenización extendida de NCLDV en algas verdes, con elementos endógenos gigantes que pueden superar 1 Mb y representar alrededor de 10% de los marcos de lectura abiertos en algunos genomas, lo que implica que los virus gigantes dejan “fósiles genéticos” capaces de reconfigurar el potencial evolutivo del hospedero. [28]
Genes metabólicos virales
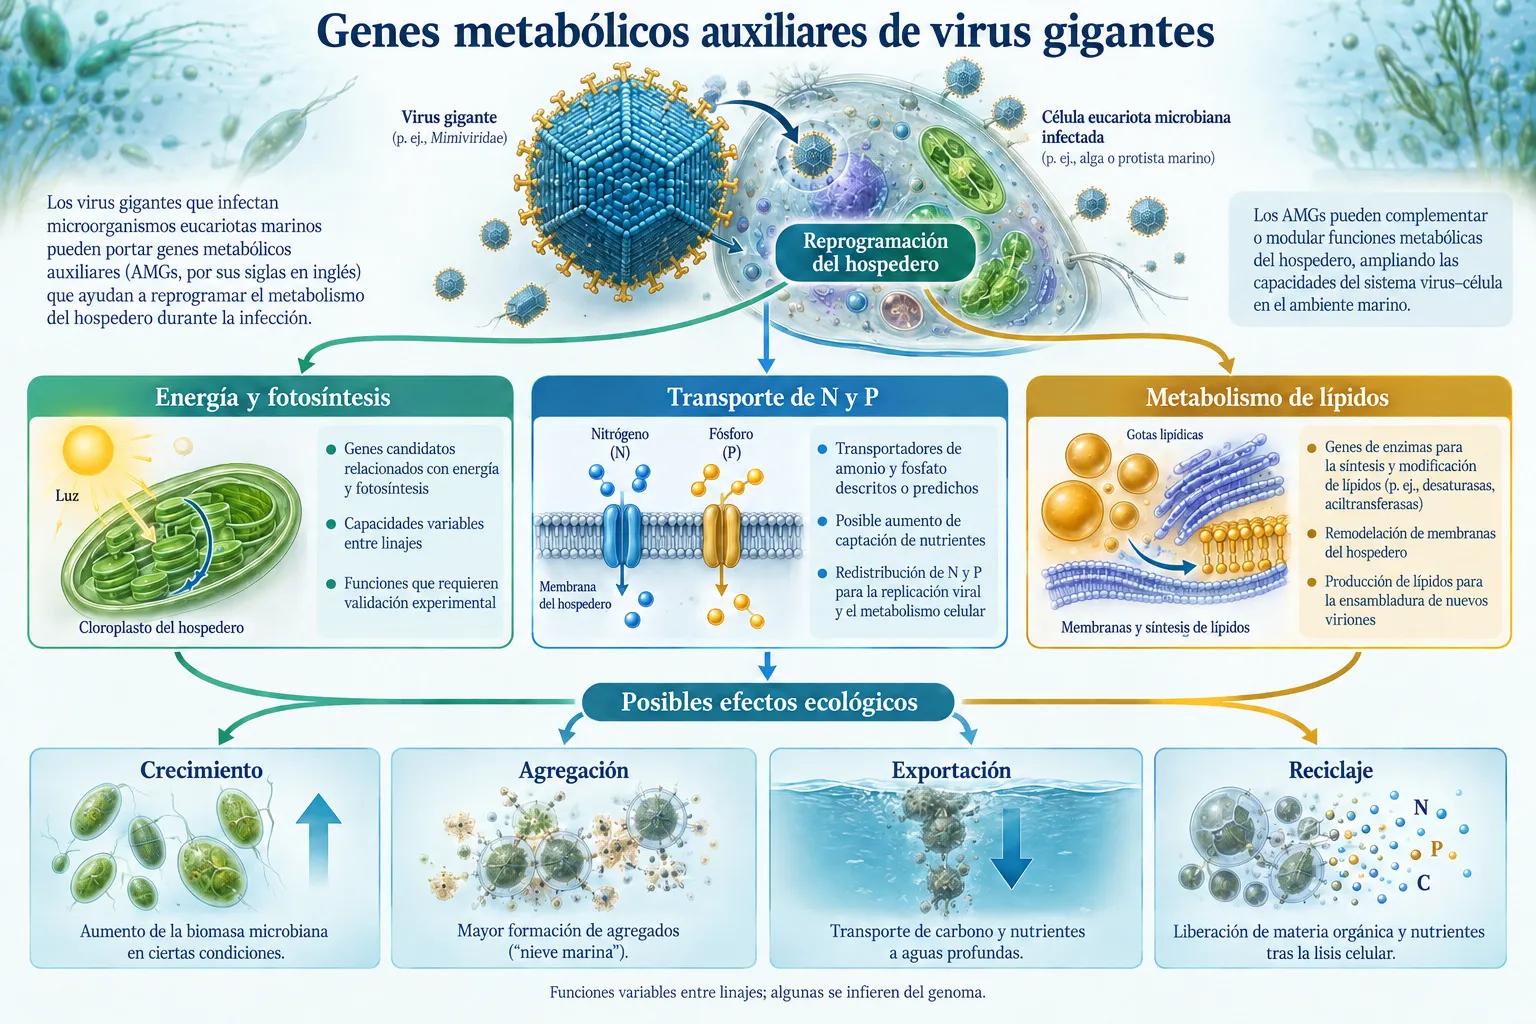
Los genes metabólicos auxiliares (AMGs) en virus gigantes aportan un mecanismo directo para cambiar procesos ecosistémicos: al expresar genes que alteran transporte o rutas bioquímicas del hospedero, la infección puede modificar tasas de fotosíntesis, adquisición de nutrientes o producción de compuestos que facilitan agregación y exportación. A escala global, el análisis metagenómico de NCLDV reconstruidos ha reportado genes con roles putativos en fotosíntesis y transporte de sustratos, reforzando la idea de “reprogramación del hospedero” como estrategia común. En un ejemplo funcional concreto, se demostró que un virus de alga porta un gen de transportador de nitrógeno, se expresa durante la infección y altera el comportamiento de captura de nitrógeno del hospedero. [29]
Otro caso paradigmático proviene del sistema coccolitóforo–coccolithovirus: el genoma viral se describió con genes inesperados (incluyendo rutas asociadas a lípidos tipo ceramida/esfingolípidos), y estudios posteriores mostraron que la infección puede inducir cambios metabólicos profundos en lípidos del hospedero, conectando genética viral con destino del carbono y dinámica de floración. En términos ecosistémicos, esto significa que el virus no solo “mata” células: puede modificar la química de partículas y el balance reciclaje–exportación, contribuyendo a cambios observables en flujos biogeoquímicos. [30]
Conclusiones
El descubrimiento y la expansión del catálogo de virus gigantes transformó dos campos a la vez: la virología (por su tamaño y repertorio genético) y la ecología microbiana (por sus efectos sobre protistas y algas, ejes de redes tróficas y ciclos biogeoquímicos). Evidencias en mar abierto muestran que los NCLDV pueden alcanzar abundancias del orden de 10^4–10^5 genomas por mL en la zona fótica, mientras que estudios de floraciones han conectado infección viral con cambios en agregación y exportación de carbono, es decir, con procesos que alteran el funcionamiento del sistema a escala de ecosistema. [31]
Además, los virus gigantes actúan como agentes de innovación genética: pueden incorporar genes del hospedero, portar módulos metabólicos y dejar huellas endógenas gigantes en genomas eucariotas. Estas rutas (HGT, AMGs, endogenización) crean puentes entre ecología y evolución, porque cambios en el repertorio genético disponible pueden traducirse en nuevas estrategias de adaptación, defensa o explotación de recursos en comunidades microbianas. [32]
A medida que mejoran las técnicas de secuenciación, ensamblaje metagenómico y medición de actividad (metatranscriptómica, enfoques de célula única), es probable que se identifiquen más virus gigantes activos en ambientes submuestreados (profundidades, lagos, suelos, criosfera) y que se afinen modelos cuantitativos sobre su contribución neta al reciclaje versus exportación de carbono. El reto central para los próximos años será conectar “genomas y genes” con “tasas y flujos” (mortalidad, remineralización, exportación) para predecir cómo estos virus participan en cambios de estado de los ecosistemas bajo presiones ambientales como calentamiento, estratificación, desoxigenación y eutrofización. [33]
Referencias
- La Scola, B. et al. (2003). A giant virus in amoebae. Science, 299(5615), 2033. doi: 10.1126/science.1081867. [34]
- Philippe, N. et al. (2013). Pandoraviruses: amoeba viruses with genomes up to 2.5 Mb reaching that of parasitic eukaryotes. Science. doi: 10.1126/science.1239181. [35]
- Legendre, M. et al. (2014). Thirty-thousand-year-old distant relative of giant icosahedral DNA viruses with a pandoravirus morphology. Proceedings of the National Academy of Sciences, 111(11), 4274–4279. doi: 10.1073/pnas.1320670111. [36]
- Legendre, Matthieu. et al. (2015). In-depth study of Mollivirus sibericum, a new 30,000-y-old giant virus infecting Acanthamoeba. Proceedings of the National Academy of Sciences, 112(38), E5327–E5335. doi: 10.1073/pnas.1510795112. [37]
- Fischer, M. G. et al. (2010). Giant virus with a remarkable complement of genes infects marine zooplankton. Proceedings of the National Academy of Sciences, 107(45), 19508–19513. doi: 10.1073/pnas.1007615107. [38]
- Wilson, W. H. et al. (2005). Complete genome sequence and lytic phase transcription profile of a Coccolithovirus. Science, 309(5737), 1090–1092. doi: 10.1126/science.1113109. [39]
- Hingamp, P. et al. (2013). Exploring nucleo-cytoplasmic large DNA viruses in Tara Oceans microbial metagenomes. The ISME Journal, 7, 1678–1695. doi: 10.1038/ismej.2013.59. [40]
- Sheyn, U. et al. (2018). Expression profiling of host and virus during a coccolithophore bloom provides insights into the role of viral infection in promoting carbon export. The ISME Journal, 12(3), 704–713. doi: 10.1038/s41396-017-0004-x. [41]
- Laber, C. P. et al. (2018). Coccolithovirus facilitation of carbon export in the North Atlantic. Nature Microbiology, 3(5), 537–547. doi: 10.1038/s41564-018-0128-4. [42]
- Schatz, D. et al. (2017). Communication via extracellular vesicles enhances viral infection of a cosmopolitan alga. Nature Microbiology, 2, 1485–1492. doi: 10.1038/s41564-017-0024-3. [43]
- Bidle, K. D. et al. (2007). Viral activation and recruitment of metacaspases in the unicellular coccolithophore, Emiliania huxleyi. Proceedings of the National Academy of Sciences, 104(14), 6049–6054. doi: 10.1073/pnas.0701240104. [44]
- Moniruzzaman, M. et al. (2020). Widespread endogenization of giant viruses shapes genomes of green algae. (Registro indexado). [28]
- Wilhelm, S. W. & Suttle, C. A. (1999). Viruses and Nutrient Cycles in the Sea. BioScience, 49(10), 781–788. [45]
- Suttle, C. A. (2007). Marine viruses — major players in the global ecosystem. Nature Reviews Microbiology, 5, 801–812. [46]
[1] https://pubmed.ncbi.nlm.nih.gov/12663918/
https://pubmed.ncbi.nlm.nih.gov/12663918/
[2] [4] [14] [19] [20] [26] [31] [32] [33] [40] https://www.nature.com/articles/ismej201359
https://www.nature.com/articles/ismej201359
[3] [9] [13] [15] [25] [27] Giant virus with a remarkable complement of genes infects marine zooplankton - PubMed
https://pubmed.ncbi.nlm.nih.gov/20974979/
[5] [22] https://www.nature.com/articles/s41564-018-0128-4
https://www.nature.com/articles/s41564-018-0128-4
[6] https://pmc.ncbi.nlm.nih.gov/articles/PMC7510689/
https://pmc.ncbi.nlm.nih.gov/articles/PMC7510689/
[7] https://pubmed.ncbi.nlm.nih.gov/23869018/
https://pubmed.ncbi.nlm.nih.gov/23869018/
[8] https://pubmed.ncbi.nlm.nih.gov/16469402/
https://pubmed.ncbi.nlm.nih.gov/16469402/
[10] [29] https://www.nature.com/articles/s41586-020-1957-x
https://www.nature.com/articles/s41586-020-1957-x
[11] https://pubmed.ncbi.nlm.nih.gov/16099989/
https://pubmed.ncbi.nlm.nih.gov/16099989/
[12] [46] https://www.nature.com/articles/nrmicro1750
https://www.nature.com/articles/nrmicro1750
[16] [30] [39] https://www.science.org/doi/10.1126/science.1113109
https://www.science.org/doi/10.1126/science.1113109
[17] [45] https://academic.oup.com/bioscience/article/49/10/781/222807
https://academic.oup.com/bioscience/article/49/10/781/222807
[18] [42] Coccolithovirus facilitation of carbon export in the North Atlantic
https://www.nature.com/articles/s41564-018-0128-4?utm_source=chatgpt.com
[21] [36] Thirty-thousand-year-old distant relative of giant ...
https://www.pnas.org/doi/10.1073/pnas.1320670111?utm_source=chatgpt.com
[23] Viral activation and recruitment of metacaspases in the ...
https://pubmed.ncbi.nlm.nih.gov/17392426/?utm_source=chatgpt.com
[24] https://pmc.ncbi.nlm.nih.gov/articles/PMC5917014/
https://pmc.ncbi.nlm.nih.gov/articles/PMC5917014/
[28] https://pubmed.ncbi.nlm.nih.gov/33208937/
https://pubmed.ncbi.nlm.nih.gov/33208937/
[34] https://www.science.org/doi/10.1126/science.1081867
https://www.science.org/doi/10.1126/science.1081867
[35] https://www.science.org/doi/10.1126/science.1239181
https://www.science.org/doi/10.1126/science.1239181
[37] https://www.pnas.org/doi/10.1073/pnas.1510795112
https://www.pnas.org/doi/10.1073/pnas.1510795112
[38] Giant virus with a remarkable complement of genes infects ...
https://www.pnas.org/doi/10.1073/pnas.1007615107?utm_source=chatgpt.com
[41] https://pubmed.ncbi.nlm.nih.gov/29335637/
https://pubmed.ncbi.nlm.nih.gov/29335637/
[43] https://www.nature.com/articles/s41564-017-0024-3
https://www.nature.com/articles/s41564-017-0024-3
[44] Viral activation and recruitment of metacaspases in the ...
https://www.pnas.org/doi/10.1073/pnas.0701240104?utm_source=chatgpt.com