Bacterias extremófilas en volcanes submarinos y su potencial biotecnológico
Introducción
Los volcanes submarinos representan algunos de los ecosistemas más extremos del planeta, caracterizados por temperaturas superiores a los 300 °C, presiones colosales y la presencia de compuestos químicos tóxicos para la mayoría de los seres vivos. En las chimeneas hidrotermales activas, conocidas como fumarolas, el fluido expulsado puede superar los 400 °C, aunque al mezclarse rápidamente con el agua fría circundante genera gradientes de temperatura que permiten la vida en sus alrededores[1]. Además de las temperaturas extremas, estos sistemas suelen presentar acidez o alcalinidad extremas: ciertos respiraderos hidrotermales someros descargan fluidos con pH ~2, mientras que otros, como el campo de Lost City, alcanzan pH 9–11[2][3]. A pesar de lo letal de estas condiciones para la mayoría de la vida, comunidades microbianas especializadas –principalmente bacterias y arqueas extremófilas– han logrado adaptarse, poblando estas chimeneas “muertas” o activas y contribuyendo significativamente a la productividad primaria del océano profundo[4][5].
Ciertas bacterias extremófilas de estos entornos desempeñan un papel esencial en ciclos geoquímicos, transformando compuestos inorgánicos en materia orgánica y cerrando el paso entre la geología y la biología. Mediante procesos de quimiosíntesis, estos microorganismos obtienen energía de reacciones químicas en ausencia de luz solar, por ejemplo oxidando sulfuro de hidrógeno o hidrógeno molecular, para fijar carbono en forma de biomasa[6]. En otras palabras, reemplazan la fotosíntesis convencional por rutas metabólicas basadas en la química de la Tierra[7]. En los últimos años, el estudio de estos microbios de las profundidades oceánicas ha revelado un potencial biotecnológico extraordinario, desde enzimas termoestables hasta aplicaciones en biorremediación, energía y biomedicina. Su capacidad de prosperar donde la vida “normal” desfallece sugiere que esconden herramientas bioquímicas únicas, forjadas por la evolución bajo condiciones extremas.
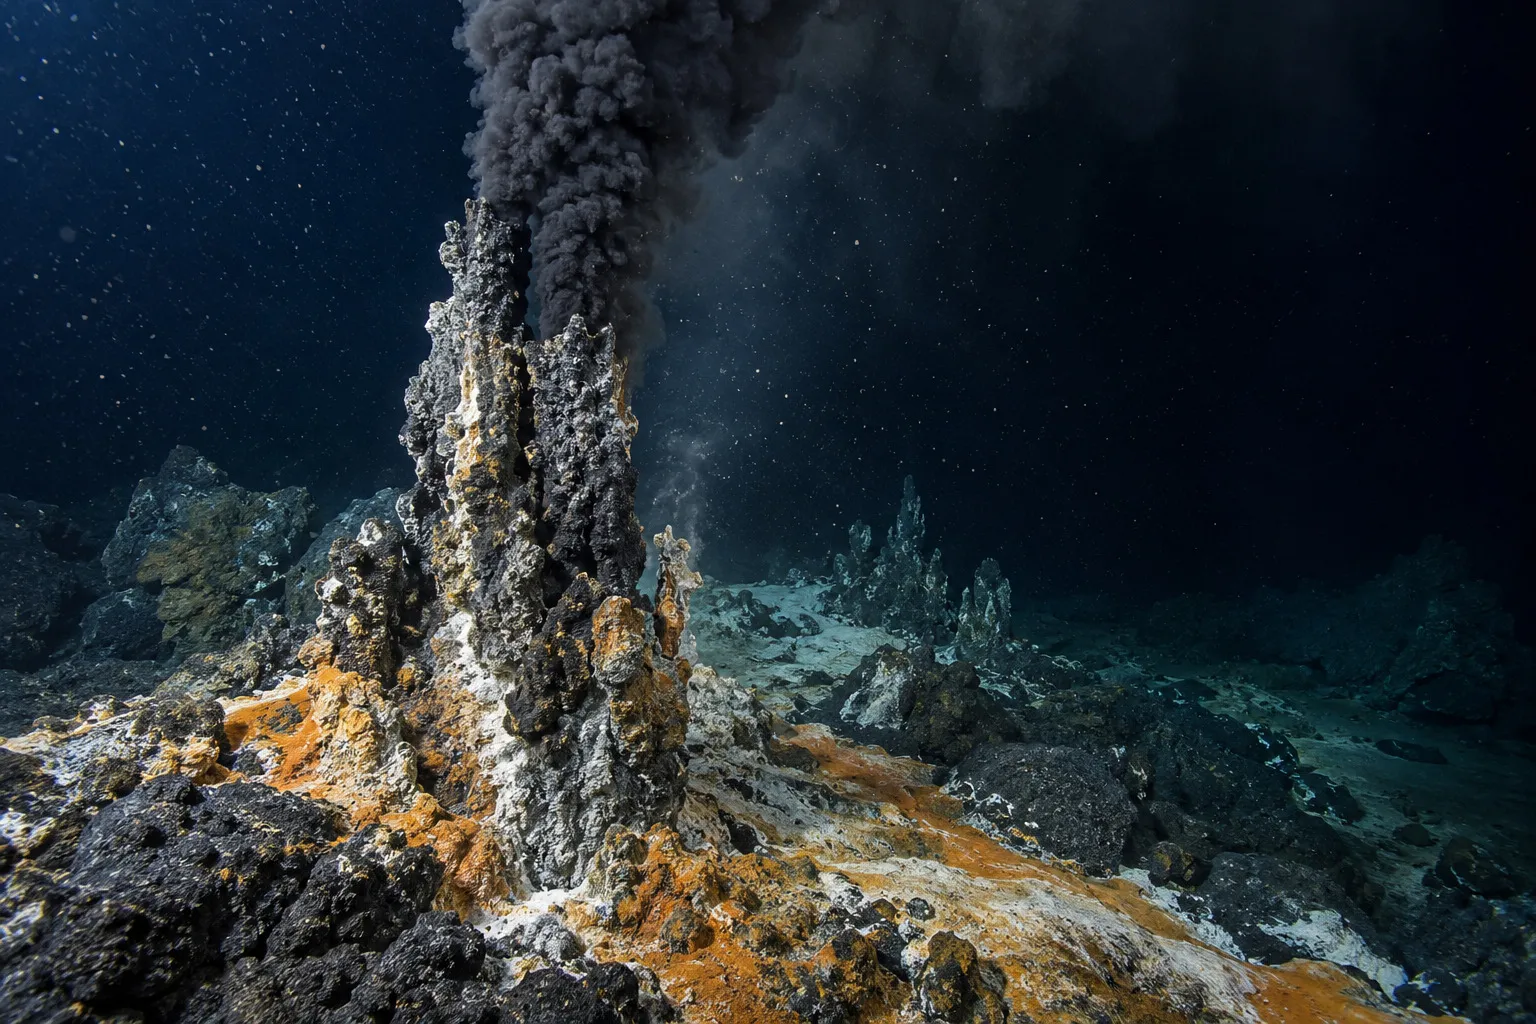
1. Ambientes hidrotermales submarinos: características extremas
Los volcanes submarinos crean gradientes ambientales extremos de temperatura, presión, acidez y química que desafían los límites conocidos para la vida. Las chimeneas hidrotermales profundas, denominadas popularmente “fumadores negros” (cuando expulsan sulfuros metálicos de aspecto oscuro) o “fumadores blancos” (ricas en sílice y barita, de tonos claros), emanan fluidos geotermales cargados de metales pesados, sulfuros y gases reductores[8]. Al salir del fondo marino, estos fluidos supercalientes se enfrían rápidamente al mezclarse con el agua oceánica a 2–4 °C, creando un fuerte gradiente de temperatura que puede ir de >300 °C en el interior de la chimenea a ~20 °C a pocos metros de distancia[1]. En este mosaico de microambientes, letal para la mayoría de organismos, surgen nichos ecológicos únicos colonizados por comunidades microbianas altamente especializadas.
1.1 Condiciones físico-químicas y gradientes térmicos – Las fumarolas hidrotermales activas expulsan fluidos que pueden alcanzar ~350–400 °C en su interior, aunque la vida microbiana prolifera en las zonas periféricas donde el agua geotermal se mezcla con el océano frío[1]. Este proceso genera gradientes térmicos abruptos: cerca de la fuente termal solo microorganismos hipertermófilos pueden persistir (algunos soportan hasta ~120 °C de manera transitoria)[9], mientras que unos centímetros más allá la temperatura puede descender a niveles mesófilos que permiten la vida de animales asociados. Asimismo, el pH en estos entornos varía ampliamente según la geología local. Sistemas hidrotermales magmáticos expulsan fluidos ácidos (pH ~2–3), como se observa en chimeneas poco profundas de islas volcánicas[10], en tanto que sistemas alcalinos como Lost City producen fluidos básicos (pH >9) ricos en metano. Las bacterias adaptadas a estos rangos extremos de pH han desarrollado modificaciones en sus membranas y enzimas para evitar la desnaturalización o la pérdida de función en entornos altamente corrosivos. Por ejemplo, muchas arqueas hipertermófilas poseen lípidos de membrana únicos (éteres de dialquilglicerol en monocapa) que les confieren gran estabilidad frente al calor y la acidez[11][12]. Estas condiciones físico-químicas extremas, combinadas con gradientes pronunciados de temperatura y composición, crean una diversidad de microhábitats donde distintas especies extremófilas encuentran nichos especializados.
Por otro lado, la presión hidrostática en las profundidades añade otro factor extremo: por cada 10 metros de profundidad la presión aumenta ~1 atmósfera. En campos hidrotermales típicos a 2000–3000 metros, las bacterias soportan presiones de 200–300 atm. Las membranas celulares de muchas extremófilas marinas muestran adaptaciones para mantener su integridad y funcionalidad bajo estas condiciones: suelen incluir una alta proporción de lípidos saturados de cadena larga, que las hace menos compresibles y mantiene la fluidez adecuada incluso a gran presión y temperatura[13]. Esto evita la ruptura de la bicapa lipídica y permite conservar gradientes electroquímicos esenciales para la vida celular. Adicionalmente, ciertas bacterias piezófilas (amantes de la presión) producen proteínas de choque por presión y bombas moleculares que contrarrestan los efectos desestabilizadores de la presión en sus estructuras internas. En conjunto, la confluencia de alta temperatura, presión y extrema química en estos ambientes ha dado lugar a una miríada de adaptaciones físico-químicas en las bacterias extremas.
1.2 Disponibilidad de nutrientes y fuentes de energía química – En la oscuridad perpetua del fondo oceánico, la vida no puede depender de la fotosíntesis; en cambio, prospera gracias a la quimiosíntesis, donde la energía proviene de reacciones químicas de compuestos inorgánicos. Las fumarolas submarinas emiten fluidos ricos en donadores de electrones como sulfuro de hidrógeno (H₂S), hidrógeno molecular (H₂), metano (CH₄) y amoníaco, junto con aceptores disponibles en el agua de mar como oxígeno, nitratos o sulfatos[6]. Diversas bacterias quimiolitotróficas han explotado esta química: por ejemplo, oxidando H₂S a sulfato o metano a CO₂, liberando energía que usan para fijar carbono (convirtiendo CO₂ en biomasa). Sulfurovum y Beggiatoa son géneros de bacterias que oxidan sulfuros en los sedimentos ventiles, mientras que arqueas metanogénicas como Methanopyrus kandleri reducen CO₂ con H₂ para producir metano en las paredes de las chimeneas[14][15]. Estos metabolismos quimiolitótrofos únicos transfieren efectivamente la energía geotérmica a la biosfera[16], actuando como base de la cadena trófica en ausencia total de luz solar.
Los fuertes gradientes redox en las cercanías de los respiraderos permiten que diversas especies microbianas obtengan energía directamente de la geología. Por ejemplo, en la interfaz entre el fluido hidrotermal anóxico y el agua de mar oxigenada, bacterias sulfuro-oxidantes consumen H₂S (un potente reductor) utilizando O₂ o nitrato (oxidantes) en reacciones exotérmicas que sustentan su crecimiento[6]. De forma análoga, otras bacterias reducen sulfuros metálicos o fijan hierro ferroso a partir de los minerales disueltos. Este aprovechamiento de la química del entorno evidencia la plasticidad de la vida: procesos que normalmente consideraríamos “geoquímicos” son empleados por los microbios para alimentarse y crecer. Gracias a ello, las comunidades extremófilas mantienen ciclos de carbono y nitrógeno en lugares donde no hay plantas ni algas, fijando CO₂ en biomasa y, en algunos casos, fijando nitrógeno atmosférico en formas asimilables (se ha aislado, por ejemplo, un metanógeno capaz de fijar N₂ a 92 °C en una chimenea del Pacífico[17]). Estas estrategias metabólicas –desde la respiración con compuestos de azufre y metales hasta la fijación de carbono en la oscuridad– convierten a los extremófilos hidrotermales en modelos fundamentales para entender el origen de la vida en la Tierra primitiva e incluso para imaginar posibles formas de vida en océanos extraterrestres donde reine la oscuridad.
2. Adaptaciones moleculares de las bacterias extremófilas
Las bacterias de volcanes submarinos han desarrollado adaptaciones bioquímicas excepcionales que les permiten funcionar bajo temperaturas abrasadoras, presiones elevadas y condiciones químicas letales. A nivel molecular, presentan proteínas enzimáticas y estructuras celulares profundamente modificadas: enzimas termoestables que no se desnaturalizan con el calor, membranas celulares reforzadas contra la presión y la acidez, y rutas metabólicas inusuales capaces de aprovechar recursos energéticos escasos. Estas adaptaciones reflejan millones de años de evolución en ambientes que matarían rápidamente a otros organismos, y hoy en día inspiran innovaciones en biotecnología. De hecho, se ha visto que muchos extremófilos producen “termozimas” (enzimas activas a altas temperaturas) y moléculas protectoras con posibles usos industriales[18]. A continuación, exploramos algunas adaptaciones clave:
2.1 Proteínas termoestables y estabilidad estructural – Una de las adaptaciones más sorprendentes de las bacterias hipertermófilas es la estabilidad de sus proteínas a temperaturas que normalmente coagularían o desnaturalizarían las proteínas comunes. Las enzimas de estos organismos muestran estructuras altamente resistentes: contienen puentes de hidrógeno adicionales, núcleos hidrofóbicos más compactos y una mayor cantidad de puentes salinos (interacciones iónicas) en comparación con sus homólogas mesófilas[19]. Estas interacciones intramoleculares extras actúan como refuerzos que evitan el desplegamiento de la proteína incluso a 80–100 °C o más. Por ejemplo, la ADN polimerasa extraída de Thermus aquaticus (bacteria termófila de ~70 °C) mantiene actividad óptima a ~72 °C; pero enzimas de arqueas hipertermófilas como Pyrococcus furiosus o Thermococcus sp. exhiben actividad catalítica óptima por encima de 100 °C[20][21]. De hecho, muchas enzimas de hipertermófilos no solo resisten el calor extremo sino que requieren altas temperaturas para funcionar adecuadamente (a 37 °C estarían prácticamente inactivas). Estructuralmente, se han identificado contribuciones específicas a esta estabilidad: redes de puentes salinos estabilizantes que apenas se ven afectadas por la temperatura[19], enlaces covalentes (como puentes disulfuro) que “cosen” regiones de la proteína, y menor flexibilidad global (lo que reduce la entropía del desplegamiento). Un ejemplo notable es la hipertermofilización de la ferredoxina de Thermotoga maritima, cuya versión ancestral tenía menor estabilidad térmica: al compararla, se halló que la enzima moderna adquirió unos pocos cambios de aminoácidos que incrementaron sus interacciones iónicas internas, desplazando su curva de estabilidad hacia temperaturas más altas[19].
Gracias a estas características, enzimas críticas de los extremófilos mantienen actividad catalítica incluso por encima de 90 °C, temperaturas que rompen las proteínas habituales. Por ejemplo, la DNA polimerasa Taq (de T. aquaticus) revolucionó la biología molecular al permitir la reacción en cadena de la polimerasa (PCR) a ~95 °C continuamente, sin perder actividad[22]. Otras enzimas de bacterias termófilas, como lipasas y celulasas, conservan 100% de actividad tras horas a 80–90 °C, donde las versiones comunes se habrían inactivado por completo. Esta robustez se debe, en parte, a que las energías de desnaturalización (ΔG) de las proteínas hipertermofílicas son mayores, y sus curvas de estabilidad están “desplazadas” y ensanchadas hacia altas temperaturas[19]. En términos prácticos, significa que la diferencia de energía entre la proteína plegada y desplegada sigue siendo favorable a la forma plegada aun con aporte de calor. El estudio de estas estructuras extremas ha impulsado el diseño de enzimas sintéticas inspiradas en extremófilos: incorporando mutaciones que imiten sus puentes salinos o hidrofóbicos se han creado variantes de enzimas mesófilas más resistentes al calor. Así, las proteínas termoestables de los respiraderos oceánicos no solo revelan los límites de la vida, sino que sirven de planos moleculares para mejorar biocatalizadores usados en la industria.
2.2 Membranas y estabilidad a presión extrema – Además de proteínas adaptadas, las bacterias extremófilas han modificado sus membranas celulares para resistir entornos inhóspitos. La membrana es la barrera fundamental que separa el interior de la célula del exterior, y su integridad es vital; sin embargo, el calor, la presión y el pH extremos tienden a desestabilizar las bicapas lipídicas convencionales. En respuesta, muchos microorganismos hipertermófilos y piezófilos exhiben lípidos de membrana únicos. Las arqueas hipertermófilas, por ejemplo, sintetizan tetraéteres bicalcilares que forman una monocapa lipídica en lugar de una bicapa: dos cadenas hidrocarbonadas largas (de 40 carbonos cada una, derivadas de isoprenoides) unidas en sus extremos por gliceroles, creando una sola capa continua que atraviesa de lado a lado la membrana[11][23]. Este diseño tipo “monocapa” es muchísimo más rígido y está menos sujeto a separarse con el calor o la presión, otorgando una estabilidad extraordinaria – como si la membrana estuviera “remachada” de lado a lado. Incluso en bacterias (que no tienen estos tetraéteres típicamente), se observa una estrategia distinta: aumentan la proporción de ácidos grasos saturados de cadena larga en sus fosfolípidos[13], lo cual incrementa los puntos de fusión de la membrana y reduce su fluidez. A altas temperaturas, esto previene que la membrana se licue excesivamente; a altas presiones, contrarresta la tendencia de la membrana a volverse demasiado rígida. En conjunto, la membrana permanece funcional en un rango amplio de condiciones extremas.
Otra adaptación membranal es la presencia de cadenas laterales ramificadas y grupos polares más complejos en los lípidos, que contribuyen a la cohesión estructural. Por añadidura, las extremófilas suelen sintetizar carotenoides, hopanoides u otros aditivos de membrana que actúan como estabilizadores frente a agentes dañinos (como radicales libres generados por radiación o compuestos oxidantes presentes en ciertas fumarolas). Estas modificaciones permiten a la célula mantener sus gradientes internos (pH, iones, potencial de membrana) aún cuando el entorno externo es extremo, asegurando la viabilidad de procesos vitales como la respiración quimiolitotrófica y el transporte de nutrientes. Cabe destacar que las adaptaciones de membrana no solo implican cambios en su composición química, sino también en las proteínas de membrana: bombear protones en entornos de pH 2 o bombear solutos a 300 atm requiere proteínas igualmente resistentes. Se han identificado bombas de efusión y canales iónicos de extremófilos que conservan actividad a presión de 100 MPa y temperaturas >80 °C, algo impensable para sus equivalentes habituales.
Estas características membranales ofrecen modelos para la biotecnología. Por ejemplo, se estudian nano-vesículas derivadas de lípidos de arqueas para encapsular fármacos que deban resistir condiciones adversas (pH estomacal muy ácido, por ejemplo) o para construir biosensores estables a temperatura. Asimismo, comprender cómo ciertas bacterias mantienen la homeostasis a pH <3 o >10 puede inspirar ingeniería de cepas microbianas que funcionen en biorreactores con condiciones químicas extremas (como en la lixiviación bioquímica de minerales). En síntesis, las membranas de extremófilos representan soluciones naturales a la estabilidad celular bajo estrés físico-químico intenso, con un enorme potencial de ser traducidas a innovaciones en nanomateriales y bioingeniería.
2.3 Rutas metabólicas únicas – Muchas bacterias extremófilas en volcanes submarinos explotan rutas metabólicas poco comunes, adaptadas para obtener energía y nutrientes en ambientes carentes de luz y a veces de materia orgánica. Un caso emblemático es el de las bacterias quimioautótrofas ya mencionadas, que pueden oxidar compuestos inorgánicos como H₂, H₂S, sulfuro de hierro (FeS) o metano para impulsar la síntesis de ATP y la fijación de CO₂. Estos procesos son extremadamente eficientes en condiciones anaeróbicas: por ejemplo, ciertas Sulfurimonas oxidan H₂ con respiración de nitratos, generando suficiente energía para fijar carbono incluso en sedimentos profundos pobres en nutrientes[6]. Otras, como Thiomicrospira, oxidan tiosulfato a sulfato en una suerte de “quimiosíntesis” que suple de materia orgánica a comunidades enteras de vent. Asimismo, en ambientes hidrotermales se han descubierto bacterias reductoras de metales que utilizan óxidos de hierro o manganeso como aceptores de electrones en ausencia de oxígeno, completando así ciclos geoquímicos localizados.
La diversidad metabólica de estas comunidades les permite colonizar nichos donde pocos nutrientes están disponibles. En ciertos casos, las bacterias extremófilas establecen consorcios metabólicos: una especie produce compuestos intermedios que otra consume. Un ejemplo son las cadenas tróficas basadas en metano: arqueas anaerobias metanotróficas (ANME) oxidan metano a CO₂ pero transfieren electrones a bacterias sulfato-reductoras, en una simbiosis obligada que ocurre en sedimentos cercanos a las exhalaciones frías de metano. En las chimeneas hidrotermales, se han hallado consorcios similares donde diferentes especies cooperan para degradar compuestos complejos liberados de las fuentes termales (como hidrocarburos policíclicos o moléculas orgánicas disueltas en el fluido vent). Muchas de estas rutas conjuntas implican enzimas especializadas: por ejemplo, oxigenasas termófilas que activan hidrocarburos en ausencia de oxígeno usando nitratos, o bien hydrogenasas reversibles que interconvierten H₂ y protones facilitando intercambios de energía entre especies[6][24].
Un aspecto crucial es que estas bacterias fijan carbono y nitrógeno en entornos sin fotosíntesis. Además de la fijación de CO₂ vía ciclo de Calvin (o mediante vías alternativas como la acetil-CoA reductiva en arqueas metanógenas), algunas extremófilas fijan N₂ en amonio a alta temperatura. Esto cierra un ciclo nutritivo completo: incluso en la completa oscuridad de las profundidades, la vida puede prosperar gracias a microorganismos que capturan los elementos básicos (C, N, S) del medio mineral. Esta capacidad convierte a los extremófilos en modelos esenciales para hipotetizar los primeros ecosistemas en la Tierra primitiva, donde probablemente la vida surgió en análogos de fuentes hidrotermales, alimentándose de química volcánica en ausencia de oxígeno atmosférico. De igual forma, guían la búsqueda de vida en otros planetas o lunas: si existe vida en lugares como Europa (luna de Júpiter) con océanos subglaciales, casi con seguridad se parecerá a estas bacterias quimiolitótrofas adaptadas a la oscuridad y la energía química[25][26].
3. Potencial biotecnológico de las bacterias extremófilas
Las extraordinarias capacidades bioquímicas de los extremófilos hidrotermales han despertado gran interés en diversos sectores industriales, incluyendo el farmacéutico, energético, químico y ambiental. Enzimas y compuestos derivados de estos microorganismos representan recursos valiosos para procesos que requieren condiciones extremas o una alta eficiencia catalítica. En particular, las enzimas termoestables obtenidas de bacterias hipertermófilas se han convertido en puntales de la biotecnología moderna, al permitir reacciones biológicas a altas temperaturas con menores riesgos de contaminación y mayor velocidad de reacción[27]. De igual modo, la capacidad de ciertos extremófilos de degradar compuestos tóxicos (metales pesados, contaminantes orgánicos) los hace candidatos ideales para biorremediación en entornos donde los microbios comunes no sobreviven[28]. A continuación, se detallan algunas aplicaciones destacadas:
3.1 Enzimas termoestables y aplicaciones industriales – Las enzimas derivadas de extremófilos han revolucionado numerosos procesos industriales al ofrecer catalizadores biológicos robustos que funcionan allí donde las enzimas habituales se desactivan. Un ejemplo paradigmático es la ADN polimerasa Taq, aislada de la bacteria termófila Thermus aquaticus de fuentes termales, que conserva su actividad a ~95 °C. Su introducción permitió automatizar la técnica PCR, ya que no era necesario añadir nueva enzima en cada ciclo térmico[22]. Este ahorro de tiempo y costo supuso un avance gigantesco en biología molecular. De forma análoga, hoy se emplean muchas otras enzimas termoestables en diferentes industrias: proteasas termoestables en detergentes industriales (para funcionar en lavados de agua caliente), celulasas y xilanasas de bacterias termofílicas en la producción de biocombustibles (permitiendo pretratamientos a alta temperatura de la biomasa lignocelulósica), y lipasas y amilasas termoestables en la industria alimentaria (para procesos que requieren esterilidad y temperaturas elevadas, como la hidrólisis de almidón en fábricas de jarabes).
El uso de enzimas resistentes al calor ofrece varias ventajas prácticas. En primer lugar, posibilita llevar a cabo reacciones a temperaturas altas, lo que suele aumentar la velocidad de reacción (según la regla de Van ’t Hoff, aproximadamente se duplica la velocidad por cada 10 °C hasta cierto punto). Esto mejora la eficiencia de los bioprocesos y puede incrementar rendimientos. En segundo lugar, minimiza el riesgo de contaminación microbiana: a 70–80 °C prácticamente ningún contaminante mesófilo puede crecer, por lo que los procesos enzimáticos pueden durar más tiempo o ser continuos sin que microorganismos indeseados consuman los sustratos o estropeen el producto[27]. Esto es especialmente útil en industrias alimentarias o farmacéuticas, donde mantener condiciones asépticas es crucial. En tercer lugar, muchas enzimas extremófilas son estables en presencia de solventes orgánicos, alta salinidad o pH extremos, permitiendo su uso en entornos químicos hostiles (por ejemplo, una esterase de una bacteria termófila puede catalizar síntesis en medio orgánico anhidro, tolerando solventes que inactivarían enzimas normales). Estas propiedades están siendo explotadas para procesos continuos más eficientes: reactores enzimáticos a 80 °C que convierten residuos agroindustriales en azúcares fermentables, sin necesidad de refrigeración ni esterilización frecuente, o la producción de compuestos químicos finos donde la enzima extremófila trabaja en solventes no convencionales. En suma, las enzimas de bacterias extremófilas permiten condiciones de reacción antes impensables, reduciendo costos (al eliminar pasos de enfriamiento o esterilización), ampliando la vida útil catalítica y abriendo la puerta a nuevas transformaciones químicas “verdes”. Actualmente se investiga también la adaptación de estas enzimas a nuevas aplicaciones: por ejemplo, en minería biomolecular, empleando bio-lixiviación de minerales sulfurados a alta temperatura con arsenito oxidasa termoestable, o en la degradación de plásticos recalcitrantes, diseñando cutinasas y PETasas de extremófilos que puedan romper polímeros plásticos a 70–80 °C acelerando su descomposición.
3.2 Biorremediación en ambientes extremos – Las bacterias extremófilas también son aliadas prometedoras para remediar ambientes contaminados donde las estrategias convencionales fallarían. Debido a su resistencia intrínseca, pueden prosperar en entornos contaminados con niveles tóxicos de metales pesados, ácidos fuertes o radionúclidos, realizando funciones de descontaminación biológica in situ. Por ejemplo, se han aislado cepas bacterianas de ventilas hidrotermales inactivas con notable tolerancia a metales como cadmio, cobre y arsénico[29]. Estas bacterias desarrollan mecanismos como la precipitación de metales en forma de sulfuros insolubles, la biosorción (secuestrar metales en polisacáridos extracelulares) o la formación de nanopartículas menos tóxicas[30]. Un caso concreto es el de Pseudomonas aeruginosa aislada de chimeneas profundas, capaz de resistir concentraciones de cobre 100 veces por encima de lo normal y precipitarlo como óxido de cobre en su biofilm[31][32]. Este tipo de actividad sugiere aplicaciones en la limpieza de efluentes industriales cargados de metales: cultivos de extremófilos pueden inmovilizar o concentrar estos elementos para su posterior recuperación.
En ambientes altamente ácidos o alcalinos, otras bacterias extremas resultan útiles. Por ejemplo, Acidithiobacillus ferrooxidans (una bacteria termoacidófila) se utiliza ya en biominería para oxidar sulfuros metálicos en pilas de lixiviación – un proceso semejante al que realizan en la naturaleza al obtener energía de la pirita (FeS₂)[33][34]. En términos de biorremediación, estas mismas bacterias pueden emplearse para detoxificar drenajes ácidos de minas: al oxidar Fe²⁺ a Fe³⁺ y precipitar sulfatos de hierro, ayudan a neutralizar efluentes mineros extremadamente ácidos. Por otro lado, extremófilos metanotróficos termófilos podrían aplicarse para consumir emisiones de metano en entornos calientes (por ejemplo, en pozos petroleros). Igualmente, consorcios de arqueas y bacterias halófilas pueden degradar compuestos orgánicos persistentes en salmueras industriales concentradas donde otras bacterias no sobreviven.
La ventaja fundamental es que su resistencia permite utilizarlas en escenarios donde bacterias tradicionales no sobrevivirían, ampliando las posibilidades de limpieza ambiental. Esto incluye lugares como suelos volcánicos con metales pesados, acuíferos geotérmicos contaminados, e incluso sitios con radiación: se han descubierto cepas extremófilas (como Thermococcus gammatolerans) que soportan dosis elevadas de radiación ionizante además de altas temperaturas[14], planteando su potencial uso en la biorremediación de residuos radiactivos calientes. Actualmente, se investiga cómo optimizar estos organismos en terreno: por ejemplo, alimentándolos con ciertas fuentes de carbono para estimular su crecimiento en el lugar contaminado (bioestimulacion), o modificándolos genéticamente (vía biología sintética) para mejorar su capacidad degradadora y luego liberarlos de forma controlada (bioaumentación). Estas aproximaciones se inspiran en la robustez natural de los extremófilos para diseñar tecnologías de descontaminación innovadoras. En un futuro cercano, podríamos ver biorreactores extremófilos limpiando aguas ácidas de minas a 50–60 °C, o suelos volcánicos sulfurados siendo remediados por consorcios bacterianos termoacidófilos, demostrando que la vida en los extremos puede ayudarnos a resolver problemas ambientales extremos.
3.3 Biología sintética y aplicaciones médicas – Más allá de enzimas y procesos industriales, las bacterias extremófilas son fuente de moléculas bioactivas con posibles aplicaciones en medicina y biotecnología avanzada. Al vivir en nichos agresivos, muchos extremófilos producen compuestos inusuales para protegerse: antioxidantes potentes para neutralizar radicales libres generados por radiación, pigmentos carotenoides que funcionan como protectores UV, péptidos antimicrobianos para competir con otras especies en espacios confinados, y exopolisacáridos con propiedades crioprotectoras o estabilizadoras[35][36]. Se han identificado al menos cinco clases principales de compuestos derivados de extremófilos con potencial farmacológico: antimicrobianos, antioxidantes, agentes crioprotectores, antitumorales y moléculas para biorremediación[37]. Por ejemplo, ciertas cepas de Streptomyces aisladas de fumarolas emiten antibióticos novedosos activos contra patógenos multirresistentes; algunas arqueas halófilas producen nanopartículas de plata que actúan como bactericidas; y exopolisacáridos de bacterias psicrófilas (de hielos polares) han mostrado actividad antioxidante comparable a la vitamina C[36]. Estas moléculas están siendo evaluadas como posibles fármacos o aditivos biomédicos. Un caso estudiado recientemente es el de un EPS (exopolisacárido) secretado por una Pseudomonas extremófila de una terma andina, que exhibe propiedades antivirales, inmunoestimulantes y emulsificantes; dicho EPS se propone como aditivo natural en alimentos o cosméticos, e incluso como coadyuvante farmacológico gracias a su estabilidad térmica y funcionalidad[38][39].
La biología sintética juega un papel crucial para explotar estos recursos a escala. Muchos extremófilos son difíciles de cultivar masivamente o manipular en laboratorio; por ello, se aislan los genes responsables de las enzimas o moléculas de interés y se insertan en microorganismos modelos (como E. coli o levaduras) que actúan como “biorreactores” vivos. Por ejemplo, genes de Thermus y Pyrococcus que codifican enzimas termoestables han sido clonados en bacterias comunes, permitiendo producir grandes cantidades de enzima para uso comercial[40]. De forma similar, rutas biosintéticas completas (por ejemplo, la vía para sintetizar un cierto carotenoide antioxidante) pueden transferirse desde una bacteria extremófila a una cepa industrial, asegurando producción a gran escala del compuesto a un costo menor que la extracción directa del ambiente. Esta estrategia ya se emplea en la síntesis de la enzima vent (ADN polimerasa de Thermococcus litoralis) para PCR de alta fidelidad, y se están desarrollando cepas recombinantes para producir osmoprotectores derivados de halófilos, antivirales de termófilos marinos, etc. Gracias a la ingeniería genética, se pueden incluso mejorar las características de las moléculas extremófilas: dirigiendo la evolución de una enzima termoestable en el laboratorio, se ha logrado incrementar su actividad a temperatura ambiente sin perder su estabilidad térmica, ampliando sus aplicaciones.
Todo este campo abre puertas a nuevos fármacos, biosensores y materiales biológicos. En medicina, los compuestos de extremófilos podrían dar lugar a antibióticos efectivos contra bacterias resistentes, antioxidantes ultraestables para terapias contra el estrés oxidativo, o enzimas que actúen in vivo en entornos hostiles (imaginemos una enzima diseñada para funcionar en la acidez del estómago, protegida de la digestión). En cuanto a biosensores, se han desarrollado sensores enzimáticos que operan a alta temperatura basados en deshidrogenasas de hipertermófilos, útiles por ejemplo en monitoreo de procesos industriales calientes. Y en materiales, proteínas extremas (como la s-layer de ciertas arqueas termoacidófilas) se están estudiando para generar recubrimientos resistentes a calor y corrosión. Las posibilidades son vastas, y a medida que aumentan las herramientas de secuenciación y edición genética, el tesoro metabólico de los extremófilos submarinos se vuelve más accesible. En síntesis, al combinar la información genética de los organismos de los infiernos oceánicos con la ingeniería biológica, estamos comenzando a cosechar innovaciones que van desde nuevos tratamientos médicos hasta soluciones ambientales y energéticas sostenibles, demostrando que los límites de la vida pueden expandar también los límites de la tecnología humana.
Conclusiones
Las bacterias extremófilas de volcanes submarinos representan uno de los recursos biológicos más prometedores y fascinantes del planeta. Su biología desafía los límites conocidos de la vida, prosperando donde la temperatura, la presión y la toxicidad parecerían prohibir toda existencia. Estas diminutas formas de vida no solo sobreviven, sino que desempeñan papeles ecológicos fundamentales, impulsando la producción primaria en la oscuridad abisal y reciclando nutrientes en condiciones imposibles[4][5]. A nivel molecular, sus adaptaciones –proteínas indestructibles, membranas reforzadas, metabolismos novedosos– amplían nuestro entendimiento de la bioquímica y ofrecen oportunidades significativas para la biotecnología moderna.
Explorar y comprender estos entornos extremos no es tarea sencilla: requiere tecnología de vanguardia (vehículos operados remotamente, laboratorios en el fondo marino) y enfoques multidisciplinarios. Sin embargo, los frutos potenciales justifican el esfuerzo. Las enzimas termoestables extraídas de extremófilos ya han mejorado procesos industriales, y es previsible que continúen surgiendo aplicaciones en ámbitos tan diversos como la producción de energía limpia, la síntesis de compuestos químicos de alto valor (de forma más ecológica), la remediación de entornos contaminados e incluso la exploración espacial (usando microbios para generar recursos en otros planetas, inspirados en su resiliencia)[41].
En conclusión, las fumarolas hidrotermales de las profundidades albergan auténticos prodigios microbianos cuyo estudio recién comienza a revelar un panorama de posibilidades. Desde enzimas que funcionan a ebullición hasta bacterias que limpian tóxicos bajo condiciones extremas, estos organismos nos enseñan sobre la plasticidad de la vida y nos proporcionan herramientas para innovar. Integrar su potencial biotecnológico podría impulsar nuevas industrias, optimizar procesos existentes y ayudar a enfrentar retos globales (como la contaminación o la necesidad de nuevas fuentes de compuestos bioactivos). Además, su estudio profundiza nuestra comprensión sobre el potencial biológico de la Tierra y alimenta la eterna pregunta de si la vida puede existir más allá de nuestro planeta, adaptada a ambientes tan extremos como los que algunos microbios ya dominan aquí. Las bacterias extremófilas de los volcanes submarinos, en definitiva, nos recuerdan que la vida tiene estrategias ingeniosas para florecer en los rincones más inhóspitos, y que en esos mismos rincones podemos encontrar soluciones a problemas muy humanos.
Referencias
- Achberger, A. M., et al. (2024). Inactive hydrothermal vent microbial communities are important contributors to deep ocean primary productivity. Nature Microbiology, 9(3), 657–668. [5]
- Antranikian, G., et al. (2017). Diversity of bacteria and archaea from two shallow marine hydrothermal vents from Vulcano Island. Extremophiles, 21(4), 733–742. DOI: 10.1007/s00792-017-0938-y [42][43]
- Zierenberg, R. A., Adams, M. W. W., & Arp, A. J. (2000). Life in extreme environments: Hydrothermal vents. Proceedings of the National Academy of Sciences (PNAS), 97(24), 12961–12962. DOI: 10.1073/pnas.210395997 [44]
- Lin, T., et al. (2022). Shallow-water hydrothermal vent system as an extreme proxy for discovery of microbiome significance in a crustacean holobiont. Frontiers in Marine Science, 9:976255. DOI: 10.3389/fmars.2022.976255 [45]
- Sievert, S. M., & Vetriani, C. (2012). Chemoautotrophy at deep-sea vents: Past, present, and future. Oceanography, 25(1), 218–233. [16][46]
- Gallo, G., & Aulitto, M. (2024). Advances in Extremophile Research: Biotechnological Applications through Isolation and Identification Techniques. Life (Basel), 14(9), 1205. DOI: 10.3390/life14091205 [18][47]
- Chan, C.-H., Yu, T.-H., & Wong, K.-B. (2011). Stabilizing salt-bridge enhances protein thermostability by reducing the heat capacity change of unfolding. PLOS ONE, 6(6), e21624. DOI: 10.1371/journal.pone.0021624 [19][48]
- Lv, X., et al. (2023). Revealing heavy metal-resistant mechanisms and bioremediation potential in a novel Croceicoccus species using microbial-induced carbonate precipitation. Journal of Marine Science and Engineering, 11(11), 2195. DOI: 10.3390/jmse11112195 [29][49]
[1] [7] [8] [9] Hydrothermal vents: survival at the ocean's hot springs | Natural History Museum
https://www.nhm.ac.uk/discover/survival-at-hydrothermal-vents.html
[2] [6] [10] [24] [45] Frontiers | Shallow-water hydrothermal vent system as an extreme proxy for discovery of microbiome significance in a crustacean holobiont
https://www.frontiersin.org/journals/marine-science/articles/10.3389/fmars.2022.976255/full
[3] Deep-sea mission finds life in the Lost City | Nature
[4] [5] Inactive hydrothermal vent microbial communities are important contributors to deep ocean primary productivity - Experts@Minnesota
[11] Agentes físicos
https://www.ugr.es/~eianez/Microbiologia/13agfisicos.htm
[12] [PDF] ARCHAEABACTERIAS HIPERTERMÓFILAS: VIDA EN EBULLICIÓN
https://revistas.ucm.es/index.php/RCCV/article/download/RCCV0707230560A/22740
[13] enbiol91
https://revistas.uma.es/index.php/enbio/article/download/18880/18905/90965
[14] [15] [18] [25] [26] [28] [41] [47] Advances in Extremophile Research: Biotechnological Applications through Isolation and Identification Techniques
https://www.mdpi.com/2075-1729/14/9/1205
[16] [17] [46] Chemoautotrophy at Deep-Sea Vents: Past, Present, and Future | Oceanography
https://tos.org/oceanography/article/chemoautotrophy-at-deep-sea-vents-past-present-and-future
[19] [48] Stabilizing Salt-Bridge Enhances Protein Thermostability by Reducing the Heat Capacity Change of Unfolding | PLOS One
https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0021624
[20] Life in extreme environments: Hydrothermal vents - PNAS
https://www.pnas.org/doi/10.1073/pnas.210395997
[21] We just sent a message to try to talk to aliens on another world ...
https://richarddawkins.net/2017/11/we-just-sent-a-message-to-try-to-talk-to-aliens-on-another-world/
[22] [27] Thermostable enzyme research advances: a bibliometric analysis | Journal of Genetic Engineering and Biotechnology | Full Text
https://jgeb.springeropen.com/articles/10.1186/s43141-023-00494-w
[23] Biosynthesis of archaeal membrane ether lipids - Frontiers
https://www.frontiersin.org/journals/microbiology/articles/10.3389/fmicb.2014.00641/full
[29] A deep-sea hydrothermal vent isolate, Pseudomonas aeruginosa ...
https://pmc.ncbi.nlm.nih.gov/articles/PMC2923461/
[30] [49] Revealing Heavy Metal-Resistant Mechanisms and Bioremediation ...
https://www.mdpi.com/2077-1312/11/11/2195
[31] [32] Isolation of highly copper-resistant bacteria from deep-sea ...
https://www.frontiersin.org/journals/microbiology/articles/10.3389/fmicb.2024.1390451/full
[33] [34] [35] [36] [37] Frontiers | Bioactivity of microbial biofilms in extreme environments
https://www.frontiersin.org/journals/microbiology/articles/10.3389/fmicb.2025.1602583/full
[38] [39] Harnessing Extremophilic Bacteria for Novel Applications - BioTechniques
[40] Cloning of thermostable DNA polymerases from hyperthermophilic ...
https://pubmed.ncbi.nlm.nih.gov/8643567/
[42] Diversity of bacteria and archaea from two shallow marine ...
[43] Diversity of bacteria and archaea from two shallow marine hydrothermal vents from Vulcano Island - PubMed
https://pubmed.ncbi.nlm.nih.gov/28493148/
[44] Hydrothermal Conditions and the Origin of Cellular Life