Influencia del ritmo circadiano en el sistema inmune
Introducción
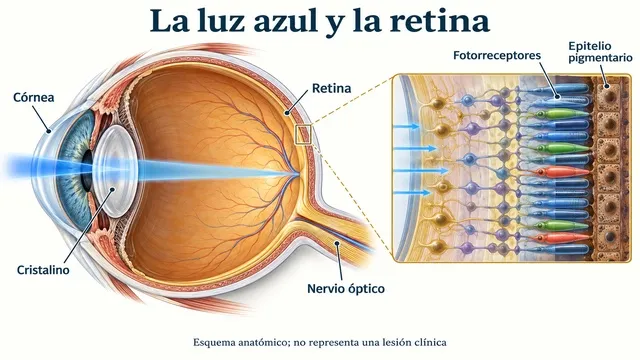
El ritmo circadiano es un sistema de cronometraje biológico que organiza la fisiología y el comportamiento en ciclos de aproximadamente 24 horas. En mamíferos, su arquitectura es jerárquica: un marcapasos central en el núcleo supraquiasmático (NSQ) del hipotálamo coordina relojes periféricos presentes en prácticamente todos los tejidos. La sincronización del reloj central con el tiempo “geofísico” ocurre principalmente mediante señales luminosas percibidas por la retina y transmitidas al NSQ, que a su vez ajusta la fisiología por vías neuronales y humorales. [1]
La inmunidad tampoco es “constante” a lo largo del día. Diversos parámetros inmunológicos —como el tráfico de leucocitos, la composición de subpoblaciones celulares en sangre y la producción de mediadores inflamatorios— muestran oscilaciones diarias cuya fase y amplitud dependen de la interacción entre reloj circadiano, sueño–vigilia, sistema nervioso autónomo y ejes endocrinos. En humanos, por ejemplo, durante el sueño nocturno se observan picos de células T naïve y de actividad proinflamatoria (en un sentido inmunológico funcional), mientras que durante el estado de vigilia diurna predominan en sangre células con funciones efectoras inmediatas (p. ej., células NK citotóxicas). [2]
Comprender esta “temporalidad” de la respuesta inmune es clínicamente relevante: el momento del día puede modular la intensidad de respuestas a antígenos, adyuvantes y patógenos, y también alterar la relación beneficio–riesgo de terapias inmunomoduladoras. La literatura translacional reciente propone que la cronoterapia (ajustar intervenciones al tiempo biológico) puede ofrecer beneficios poblacionales (p. ej., campañas de vacunación con ventanas horarias) aun cuando la personalización completa por cronotipo todavía sea tecnológicamente limitada. [3]
Bases biológicas del ritmo circadiano
El fundamento del ritmo circadiano reside en relojes moleculares celulares que generan oscilaciones endógenas y las acoplan a señales ambientales y sistémicas. Estas oscilaciones no solo “marcan la hora”: reprograman la expresión génica y el estado funcional de células y tejidos, incluyendo células inmunes, para anticipar demandas recurrentes del ambiente (actividad, alimentación, exposición a patógenos) y del propio organismo (reparación tisular, consolidación de memoria inmunológica). [4]
El reloj biológico central y los relojes periféricos
El NSQ opera como reloj maestro al integrar información luminosa y coordinar la fase circadiana del organismo. La evidencia fisiológica y de sistemas define al NSQ como un marcapasos central en el encéfalo que sincroniza ritmos conductuales y fisiológicos mediante señales neuronales y humorales; en términos de entrada (“input”), el principal sincronizador es la luz transmitida desde la retina hacia el NSQ. [5]
Los relojes periféricos —incluidos los de órganos inmunológicos y de células inmunitarias circulantes o residentes— reciben esa coordinación central, pero también responden a señales locales (metabolitos, citoquinas, tono simpático, glucocorticoides). Esto permite que el sistema inmune ejecute programas diferenciados por fase circadiana: redistribución de leucocitos entre sangre y tejidos, cambios en expresión de moléculas de adhesión/quimiocinas y variaciones en la “competencia” funcional frente a desafíos. [6]
Genes reloj y regulación molecular
En el núcleo del reloj molecular se encuentra un circuito de retroalimentación transcripcional–traduccional. En mamíferos, los activadores CLOCK (y su parálogo NPAS2) y BMAL1 forman un heterodímero que se une a elementos E-box y activa la transcripción de genes represores como Per (Per1–3) y Cry (Cry1–2). A medida que PER y CRY se acumulan, regresan al núcleo y reprimen la actividad CLOCK:BMAL1, cerrando el ciclo y generando oscilaciones cercanas a 24 horas. [7]
Además del “núcleo” CLOCK/BMAL1–PER/CRY, existen bucles accesorios que moldean fases y amplitudes, incluyendo el eje de receptores nucleares REV-ERB y ROR, que regula rítmicamente la transcripción de Bmal1 y de otros genes controlados por reloj. Este entramado no es un detalle ornamental: en células inmunes, factores como REV-ERBα se han propuesto como nodos que conectan el tiempo circadiano con programas inflamatorios (p. ej., regulación selectiva de citoquinas). [8]
Cuando estos genes reloj se alteran (por manipulación genética o desalineación crónica), emergen fenotipos inmunológicos medibles. En un ejemplo clásico, la represión circadiana mediada por BMAL1 en células mieloides regula oscilaciones diurnas de monocitos inflamatorios Ly6Chi; la pérdida de este control interfiere con la ciclicidad y se asocia con mayor propensión a patología inflamatoria en modelos animales. En paralelo, la modulación circadiana de vías inflamatorias por REV-ERBα se ha vinculado con control de quimiocinas como CCL2 en macrófagos, influyendo en potencial de reclutamiento celular. [9]
Ritmos circadianos en la respuesta inmunológica
La inmunidad puede entenderse como un sistema dinámico de “vigilancia y respuesta” que debe balancear eficacia y costo. En ese contexto, el reloj circadiano funciona como un regulador que distribuye recursos: ajusta la probabilidad de encuentro antígeno–célula, la migración hacia nichos tisulares/linfoides y la reactividad a señales microbianas. Este control temporal ayuda a explicar por qué algunos desafíos inmunológicos —incluidos estímulos inflamatorios— presentan variación dependiente de la hora del día. [10]
Variaciones diarias en células inmunitarias
En humanos, múltiples subpoblaciones leucocitarias varían a lo largo del ciclo sueño–vigilia, con desplazamientos que reflejan cambios hormonales (cortisol/catecolaminas) y del tono autonómico. Un patrón recurrente en estudios de fisiología del sueño muestra que durante el sueño nocturno aumentan (en sangre o por redistribución medible) células relacionadas con fases tempranas de respuesta adaptativa (p. ej., células T naïve/central memory), mientras que durante la vigilia predominan características efectoras rápidas (p. ej., NK citotóxicas). [11]
En modelos murinos (nocturnos), se ha descrito una coreografía circadiana particularmente nítida en neutrófilos y tráfico hematopoyético: existe un subgrupo de neutrófilos “envejecidos” (CD62Llo CXCR4hi) que se elimina de forma rítmica al final del periodo de descanso y, al infiltrarse en médula ósea, modula el nicho hematopoyético mediante macrófagos y receptores nucleares sensores de colesterol. De manera complementaria, el tráfico de linfocitos a través de ganglios linfáticos también muestra regulación circadiana, y la pérdida del reloj en células T puede abolir componentes temporales de la respuesta adaptativa en modelos experimentales. [12]
Producción de citoquinas e inflamación
Las citoquinas inflamatorias y antiinflamatorias también se organizan en el tiempo. En la fisiología del sueño humano, se ha descrito que la producción/actividad de citoquinas proinflamatorias tiende a incrementarse durante el sueño nocturno, en paralelo a una constelación endocrina característica (p. ej., descenso de cortisol/catecolaminas y aumento de mediadores como melatonina, hormona del crecimiento y prolactina), mientras que durante la vigilia diurna se observa un sesgo relativo hacia señales antiinflamatorias y/o poblaciones efectoras circulantes. [11]
A nivel mecanístico, varios trabajos muestran que células innatas poseen relojes autónomos capaces de “gated responses” ante estímulos microbianos. En macrófagos, por ejemplo, se ha documentado la existencia de relojes circadianos intrínsecos que persisten ex vivo y se asocian con ritmicidad en la secreción inducida de citoquinas como TNF-α e IL-6. En concordancia, REV-ERBα ha sido implicado como un vínculo entre reloj y producción selectiva de citoquinas inflamatorias en respuestas a endotoxina, y REV-ERBα también puede modular programas inflamatorios en macrófagos a través de regulación directa de quimiocinas como CCL2. [13]
Este control temporal está modulando por ejes neuroendocrinos. Por un lado, cortisol y catecolaminas tienden a ejercer acciones antiinflamatorias en rangos fisiológicos; por otro, en humanos diurnos la melatonina alcanza niveles altos durante la noche y participa en la señalización sistémica de “oscuridad”, con efectos inmunomoduladores que interactúan con el contexto de sueño y fase circadiana. En estudios clínicos y experimentales, estas interacciones explican por qué la misma intervención (p. ej., vacunación o desafío endotóxico) puede generar perfiles inmunes diferentes según el momento del día, aun si la dosis es idéntica. [14]
Ritmos circadianos y defensa contra patógenos
La consecuencia funcional más atractiva de estas oscilaciones es que la susceptibilidad y/o la severidad de infecciones puede depender del tiempo biológico. Un ejemplo sólido de “inmunidad con reloj” es el reconocimiento por receptores tipo Toll: se ha demostrado que el reloj circadiano controla la expresión y función de TLR9, y que en un modelo de vacunación en ratón (adyuvante ligando de TLR9) la inmunización realizada en una fase de mayor respuesta de TLR9 se asocia con una respuesta adaptativa mejorada semanas después. En un modelo dependiente de TLR9 de sepsis, la severidad también dependió del momento de inducción, en línea con cambios diarios en TLR9. [15]
Otros estudios apuntan a que la “hora inmunológica” influye en componentes celulares clave. En ratón, la oscilación diurna de monocitos inflamatorios Ly6Chi —regulada por BMAL1 en células mieloides— se ha vinculado con protección frente a infección por Listeria monocytogenes y con consecuencias en inflamación aguda/crónica cuando la ritmicidad se pierde. Además, la compartimentalización diurna de neutrófilos (incluida su maduración/“envejecimiento” y eliminación rítmica) se ha propuesto como un mecanismo que coordina defensa antimicrobiana y protección vascular, ilustrando un trade-off temporal entre eficacia y daño colateral. [16]
Implicaciones médicas y cronoterapia
La cronoterapia busca alinear la administración de tratamientos o intervenciones preventivas con ventanas del día en las que el beneficio sea mayor o los efectos adversos menores. La motivación no es solo teórica: existe evidencia de que el índice terapéutico de múltiples fármacos varía con la hora del día, y se ha propuesto que intervenciones controladas (clinics/infusión/hospital) son escenarios realistas para explotar ritmos biológicos, mientras que la personalización completa por fase circadiana individual sigue siendo un reto. [17]
Vacunación y ritmos biológicos
En humanos, un ensayo por conglomerados en adultos mayores (≥65 años) comparó vacunación antigripal en la mañana (9–11 h) versus tarde (15–17 h) y encontró diferencias dependientes de la cepa en el incremento de títulos de anticuerpos a 1 mes. En particular, la vacunación matutina se asoció con mayor incremento para H1N1 y para la cepa B, mientras que para H3N2 no se observó diferencia significativa; en ese estudio, citoquinas y esteroides basales no explicaron (no mediaron) el efecto. [18]
Desde una perspectiva inmunológica, estos hallazgos son plausibles porque la respuesta a una vacuna depende de pasos temporales (captura y procesamiento antigénico, migración a ganglios, presentación por células dendríticas, activación y expansión clonal). La evidencia experimental muestra que el tráfico de linfocitos por ganglios linfáticos ocurre de manera circadiana y que la pérdida del reloj en células T puede borrar componentes temporales de respuestas adaptativas; además, se ha descrito que el reloj circadiano puede modular respuestas a vacunación a través de funciones de células dendríticas (procesamiento/presentación antigénica) en modelos murinos. [19]
Sin embargo, la cronovacuna no es universal ni “automática”: la señal puede variar por tipo de vacuna, edad, adyuvantes, historial inmunológico, exposición a luz nocturna y cronotipo, lo que dificulta capturar efectos en entornos clínicos heterogéneos. Revisiones translacionales recientes sugieren que, aun con estas limitaciones, la vacunación poblacional en ventanas amplias (≈4 horas) podría generar beneficios agregados, con la advertencia de que se requieren diseños con desenlaces clínicos además de biomarcadores cuando sea posible. [20]
Ritmo circadiano y enfermedades inflamatorias
Muchas enfermedades inflamatorias crónicas manifiestan ritmos sintomáticos y bioquímicos. En artritis reumatoide, la rigidez matutina es un rasgo clínico típico, y la estrategia de “apuntar” a ritmos fisiopatológicos (p. ej., picos nocturnos/temprano-matutinos de mediadores inflamatorios) ha impulsado ensayos de glucocorticoides con liberación modificada para cambiar el momento efectivo de exposición farmacológica. [21]
En el estudio CAPRA-1 (prednisona de liberación modificada vs inmediata), la formulación de liberación modificada mostró reducción clínicamente relevante de la duración de rigidez matutina y fue bien tolerada; extensiones y ensayos subsecuentes han sostenido la lógica de cronoterapia con prednisona en artritis reumatoide, con evaluaciones adicionales de seguridad y actividad de enfermedad. Estos resultados representan un ejemplo claro de cómo la temporalidad de la inflamación puede convertirse en un objetivo terapéutico, no solo un “detalle” fisiológico. [22]
Impacto del sueño y del trabajo nocturno
El sueño y el sistema circadiano actúan en conjunto sobre la inmunidad. Revisiones integradoras describen que, durante el sueño nocturno humano, se desplaza el balance hacia procesos que favorecen fases tempranas de respuesta adaptativa (tráfico y extravasación de células T, señales que facilitan interacción APC–T, producción de ciertas citoquinas), contribuyendo a la formación de memoria inmunológica; en contraste, la vigilia diurna se asocia con mayor presencia relativa de células efectoras inmediatas en circulación. [11]
El trabajo nocturno o en turnos puede causar desalineación circadiana (cronodisrupción) y se ha investigado por su relación con cambios en células inmunes, citoquinas, infecciones autoinformadas y respuestas vacunales. La evidencia no siempre es uniforme (por heterogeneidad de diseños, exposiciones y confusores), pero revisiones recientes concluyen que hay señales de impacto inmunológico potencial y que la relevancia clínica depende del contexto y la calidad metodológica de los estudios. [23]
En paralelo, la privación o insuficiencia de sueño alrededor de la vacunación se asocia con menor respuesta humoral en metaanálisis recientes, sugiriendo que medidas simples (asegurar sueño suficiente en los días previos y posteriores) podrían mejorar la inmunogenicidad, independientemente del horario exacto de administración. Este punto es importante porque, en la práctica, la optimización del “tiempo biológico” incluye tanto la hora del día como el estado de sueño–vigilia y la exposición a luz (especialmente luz nocturna). [24]
Conclusiones
El sistema inmune está profundamente influenciado por el tiempo biológico. La evidencia moderna apoya que relojes circadianos centrales y periféricos modulan el tráfico de leucocitos, la reactividad innata (p. ej., vías tipo Toll), la producción de citoquinas y la calidad de respuestas adaptativas; estas variaciones no son “ruido”, sino un componente organizador de la homeostasis y de la defensa, con claras implicaciones para infección e inflamación. [25]
En medicina, esta comprensión abre un espacio realista para intervenciones temporales: desde cronovacunas (con evidencia humana sugerente, aunque dependiente del tipo de vacuna y del contexto) hasta cronoterapia antiinflamatoria (p. ej., prednisona de liberación modificada en artritis reumatoide). El desafío inmediato es traducir ritmos biológicos a decisiones clínicas con desenlaces clínicamente relevantes, considerando variabilidad individual, cronodisrupción por estilos de vida modernos y factibilidad operativa en sistemas de salud. [26]
Referencias
- Christoph Scheiermann[27], et al. Circadian control of the immune system. Nat Rev Immunol. 2013;13(3):190–198. doi:10.1038/nri3386. Enlace:
https://doi.org/10.1038/nri3386. [28] - Kyuhoon Daniel Nguyen[29], et al. Circadian gene Bmal1 regulates diurnal oscillations of Ly6C(hi) inflammatory monocytes. Science. 2013;341(6153):1483–1488. doi:10.1126/science.1240636. Enlace:
https://science.org/doi/10.1126/science.1240636. [30] - María Casanova-Acebes[31], et al. Rhythmic modulation of the hematopoietic niche through neutrophil clearance. Cell. 2013;153(5):1025–1035. doi:10.1016/j.cell.2013.04.040. Enlace:
https://doi.org/10.1016/j.cell.2013.04.040. [32] - Shogo Sato[33], et al. A circadian clock gene, Rev-erbα, modulates the inflammatory function of macrophages through the negative regulation of Ccl2 expression. The Journal of Immunology. 2014;192(1):407–417. doi:10.4049/jimmunol.1301982. Enlace:
https://doi.org/10.4049/jimmunol.1301982. [34] - Charna Dibner[35], et al. The mammalian circadian timing system: organization and coordination of central and peripheral clocks. Annu Rev Physiol. 2010;72:517–549. doi:10.1146/annurev-physiol-021909-135821. Enlace:
https://doi.org/10.1146/annurev-physiol-021909-135821. [36] - Joseph S Takahashi[37], et al. Transcriptional architecture of the mammalian circadian clock. (Revisión de mecanismos del reloj molecular). Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC5501165/. [7] - Lisa Besedovsky[38], et al. Sleep and immune function. (Revisión). Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC3256323/. [39] - Adam C Silver[40], et al. The circadian clock controls Toll-like receptor 9-mediated innate and adaptive immunity. Immunity. 2012;36(2):251–261. doi:10.1016/j.immuni.2011.12.017. Enlace:
https://doi.org/10.1016/j.immuni.2011.12.017. [15] - David Druzd[41], et al. Lymphocyte circadian clocks control lymph node trafficking and adaptive immune responses. Immunity. 2017;46(1):120–132. doi:10.1016/j.immuni.2016.12.011. Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC5263259/. [42] - Joanna E Long[43], et al. Morning vaccination enhances antibody response over afternoon vaccination: A cluster-randomised trial. Vaccine. 2016;34(24):2679–2685. doi:10.1016/j.vaccine.2016.04.032. Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC4874947/. [18] - Frank Buttgereit[44], et al. Efficacy of modified-release versus standard prednisone to reduce duration of morning stiffness of the joints in rheumatoid arthritis (CAPRA-1). (Ensayo clínico). Enlace (registro PubMed):
https://pubmed.ncbi.nlm.nih.gov/18207016/. [45] - Buttgereit F, et al. Targeting pathophysiological rhythms: prednisone chronotherapy shows sustained efficacy in rheumatoid arthritis. Ann Rheum Dis. 2010;69(7):1275–1280. doi:10.1136/ard.2009.126888. Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC2946119/. [46] - Thorkildsen MS[47], et al. The Effects of Shift Work on the Immune System. (Revisión narrativa/sistemática con síntesis). Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC10773516/. [48] - Karine Spiegel[49], et al. A meta-analysis of the associations between insufficient sleep and viral vaccine responses. (Metaanálisis). Enlace (PubMed):
https://pubmed.ncbi.nlm.nih.gov/36917932/. [50] - H Mok[51], et al. Circadian immunity from bench to bedside: a practical guide. (Revisión translacional). Enlace:
https://pmc.ncbi.nlm.nih.gov/articles/PMC10836804/. [52]
[1] [4] [5] [36] https://www.annualreviews.org/doi/pdf/10.1146/annurev-physiol-021909-135821
https://www.annualreviews.org/doi/pdf/10.1146/annurev-physiol-021909-135821
[2] [11] [14] [29] [39] https://pmc.ncbi.nlm.nih.gov/articles/PMC3256323/
https://pmc.ncbi.nlm.nih.gov/articles/PMC3256323/
[3] [17] [20] [26] [52] https://pmc.ncbi.nlm.nih.gov/articles/PMC10836804/
https://pmc.ncbi.nlm.nih.gov/articles/PMC10836804/
[6] [25] [28] [37] Circadian control of the immune system - PMC
https://pmc.ncbi.nlm.nih.gov/articles/PMC4090048/
[7] [8] [35] [38] https://pmc.ncbi.nlm.nih.gov/articles/PMC5501165/
https://pmc.ncbi.nlm.nih.gov/articles/PMC5501165/
[9] [16] [27] [30] [33] [43] [44] [47] [51] Circadian gene Bmal1 regulates diurnal oscillations of Ly6C ...
https://pubmed.ncbi.nlm.nih.gov/23970558/?utm_source=chatgpt.com
[10] https://pmc.ncbi.nlm.nih.gov/articles/PMC5247264/
https://pmc.ncbi.nlm.nih.gov/articles/PMC5247264/
[12] [32] https://pmc.ncbi.nlm.nih.gov/articles/PMC4128329/
https://pmc.ncbi.nlm.nih.gov/articles/PMC4128329/
[13] https://pmc.ncbi.nlm.nih.gov/articles/PMC2795539/
https://pmc.ncbi.nlm.nih.gov/articles/PMC2795539/
[15] https://pmc.ncbi.nlm.nih.gov/articles/PMC3315694/
https://pmc.ncbi.nlm.nih.gov/articles/PMC3315694/
[18] [31] https://pmc.ncbi.nlm.nih.gov/articles/PMC4874947/
https://pmc.ncbi.nlm.nih.gov/articles/PMC4874947/
[19] [42] https://pmc.ncbi.nlm.nih.gov/articles/PMC5263259/
https://pmc.ncbi.nlm.nih.gov/articles/PMC5263259/
[21] [22] [45] [49] https://pubmed.ncbi.nlm.nih.gov/18207016/
https://pubmed.ncbi.nlm.nih.gov/18207016/
[23] [48] https://pmc.ncbi.nlm.nih.gov/articles/PMC10773516/
https://pmc.ncbi.nlm.nih.gov/articles/PMC10773516/
[24] [40] [50] https://pubmed.ncbi.nlm.nih.gov/36917932/
https://pubmed.ncbi.nlm.nih.gov/36917932/
[34] A circadian clock gene, Rev-erbα, modulates the ...
https://pubmed.ncbi.nlm.nih.gov/24307731/?utm_source=chatgpt.com